Collective dynamical regimes predict invasion success and impacts in microbial communities(泛读卡片)
> 一句话定位:用实验加广义 Lotka–Volterra 模型证明,居民群落的集体动力学状态——稳定、涨落、还是强相互作用下的多稳态——是预测入侵成败的首要变量。涨落群落比稳定群落更容易被入侵(13%±4% 对 1.7%±1.7%,约 8 倍),也更多样;相互作用越强、物种池越大,入侵概率越低;把多样性归一化为「存活分数」后,所有条件下入侵概率都约等于存活分数(r=0.77),统一了生态学里「多样性—可入侵性」几十年方向相反的证据。这篇论文是「动力学 regime 预测」路线的代表,对 ML 读者最大的启发,是把「新任务进入已训练模型」看成同构的群落入侵问题。
问题:入侵成败到底由什么决定
入侵指一个新物种进入已有群落并站稳脚跟。在微生物世界,这类事件离人很近:C. difficile 致病菌侵入肠道菌群会引发腹泻甚至结肠炎,病原体侵入土壤或水体微生物群落会改变生态系统功能。要预防和治疗,就得先预测两件事:这个新物种能不能入侵成功?成功之后对原有群落冲击多大?
文献长期分成两派。一派盯入侵者:单培养生长率、扩散能力、初始种群大小、天敌释放假说;另一派盯居民群落:组成、多样性、生物抗性假说。生物抗性假说(Elton 1958 年提出)说高多样性群落资源利用充分、空位少,更难被入侵,这个假说在宏观生态和微生物领域都时灵时不灵。作者指出,卡点在于三个变量纠缠:多样性容易测但关系不稳定,相互作用重要但难量化,而居民群落「处于平衡还是持续涨落」这个动力学维度,几乎没人把它当成正经的预测变量——主流模型默认群落停在某个平衡点,把涨落当环境噪音。
方法一:17 个合成群落、约 9 种入侵菌的实验平台
实验把变量拆得很干净。他们用 80 株从土壤、树叶、查尔斯河水分离的细菌搭菌株库,构造 17 个合成居民群落,每个群落物种池大小 S=20,高营养培养基。培养方式是每天序列稀释传代,同时从物种池补入扩散个体,模拟自然界的持续迁入。装配 6 天后,每个群落随机接受 7–9 次独立的入侵测试:每次挑一种池外的入侵菌加进去,再培养 6 天,用 16S 测序盯物种相对丰度、用 OD600 盯总生物量。成败的判定标准是第 12 天入侵菌相对丰度超过 8×10⁻⁴(这个阈值贴合 16S 测序的检测极限)。
这个平台跑出来的第一组数字就反常规:整体成功率只有 7%±2%;存活物种 2–5 个的低多样性群落,入侵成功率 3%±2%;存活 6–9 个的高多样性群落,成功率 13%±5%。在同一物种池、同一营养条件下,更丰富的群落反而更容易被入侵,正相关系数 r=0.5(P=0.047)。
方法二:广义 Lotka–Volterra 模型与相图
理论侧用的是广义 Lotka–Volterra 模型加一个物种池扩散项,方程是
dN_i/dt = N_i(1 − N_i − Σ_{j≠i} α_ij N_j) + D(1 − N_i)。
先给预期:这个式子回答「每个物种的丰度随时间怎么变」。逐项解释:N_i 是物种 i 的丰度,归一化到自己的承载量;α_ij 是物种 j 对物种 i 的抑制强度,自抑制 α_ii=1;求和项把其余所有物种的竞争压力加起来;D 是扩散率,表示物种池持续往群落里补充个体。相互作用矩阵随机采样,α_ij 从均匀分布 U[0, 2⟨αij⟩] 抽取,⟨αij⟩ 是平均相互作用强度——随机矩阵的用法继承自 Robert May 1972 年的复杂度—稳定性理论,好处是抓住物种异质性又不需要假设具体的群落结构。模拟里入侵者在 t=10³ 引入,跑到 t=2×10³ 判断成败,每个参数组跑 1000 次。
模型把 ⟨αij⟩ 和物种池大小 S 两个参数扫出一张相图,中间有两条边界:物种存活边界(虚线,跨过去开始有物种灭绝)和稳定性边界(实线,跨过去群落失稳、进入涨落)。相图给出三类 regime:弱相互作用下的稳定态;强相互作用加中等池大小下的涨落态(极限环或混沌,由相互作用自发产生,不需要环境扰动);强相互作用加大池下的多稳态(同样条件可以停在几个不同组成上,取决于历史)。在这张相图上,模型预测:相同条件下涨落群落比稳定群落可入侵性高;⟨αij⟩ 和 S 增大都压低入侵概率;把 richness 除以 S 得到存活分数后,入侵概率和存活分数在模拟里塌缩到同一条线。
关键结果:三组实验把预测钉死
第一组对照的是动力学状态。17 个群落里 8 个持续涨落、9 个稳定。图 p20 和 p21 并排对照,差别一眼能看出:涨落群落的物种相对丰度时序一直在起伏,稳定群落收敛后基本不动。
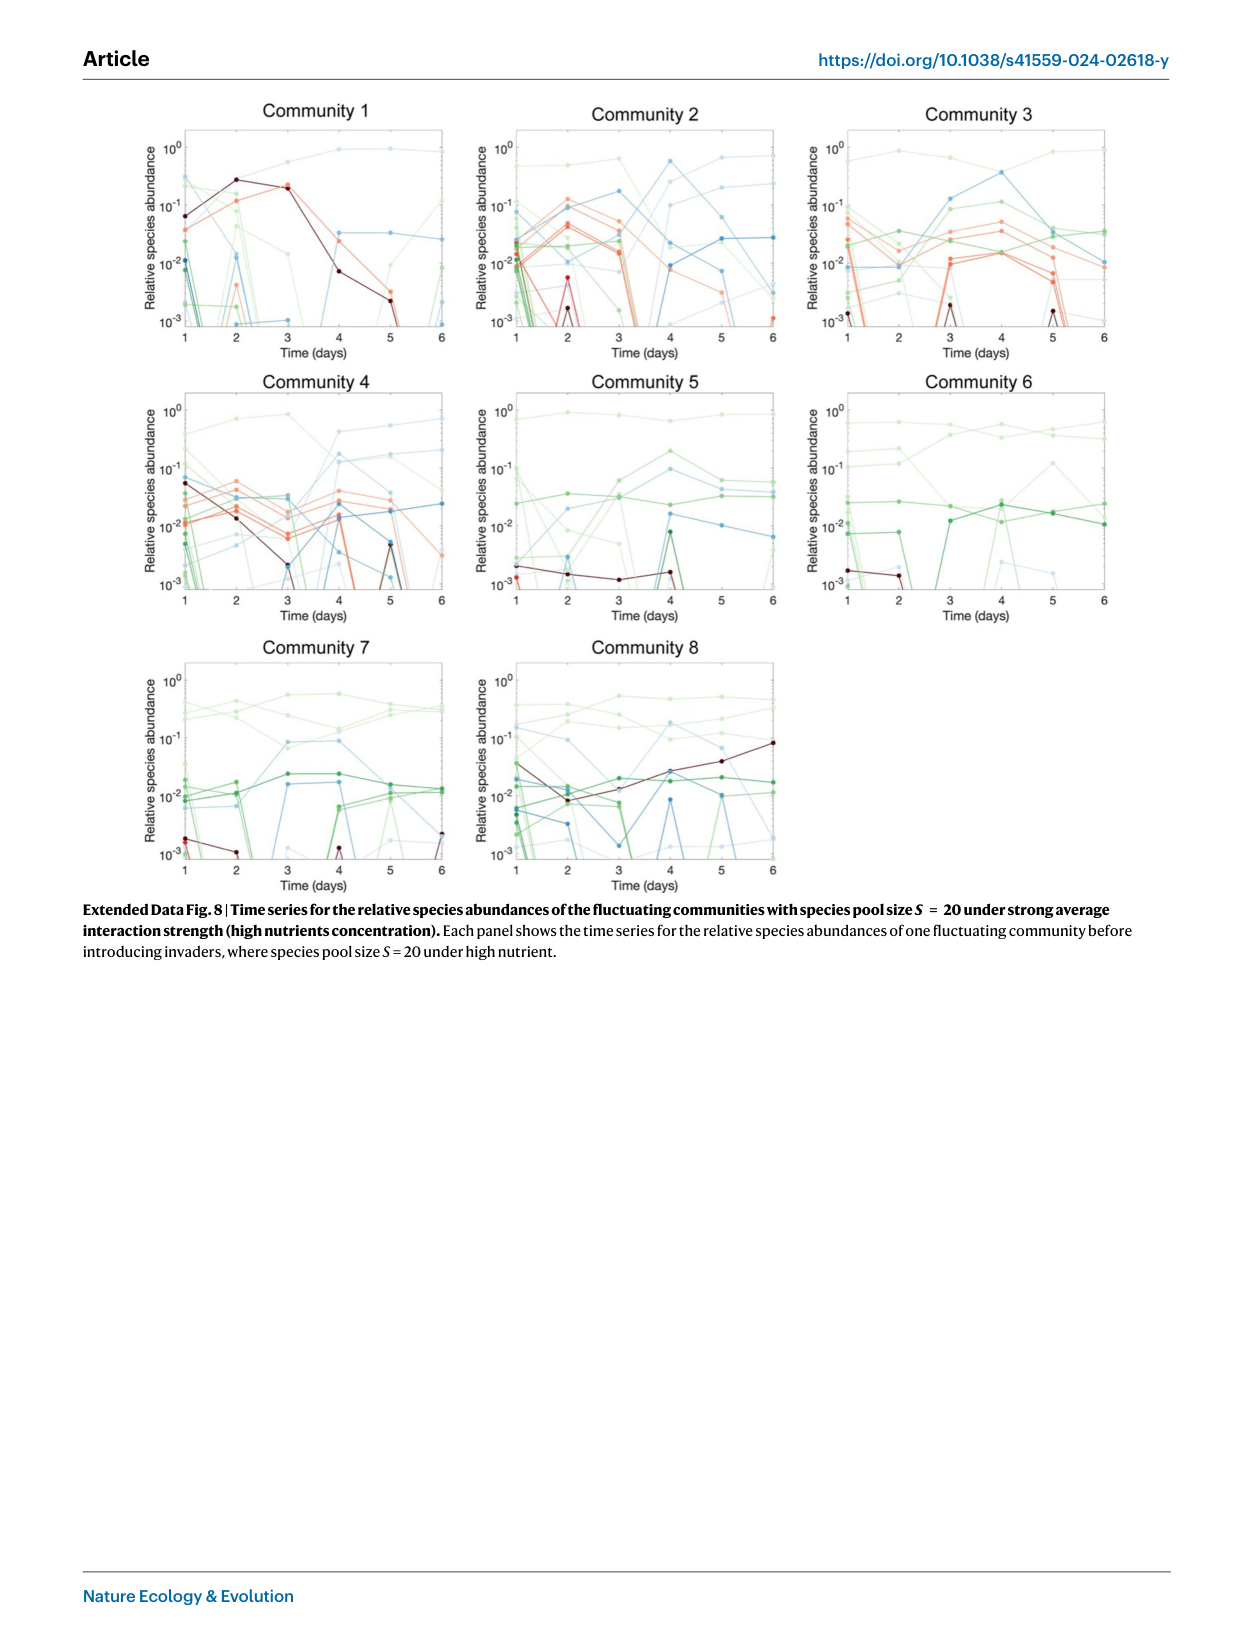
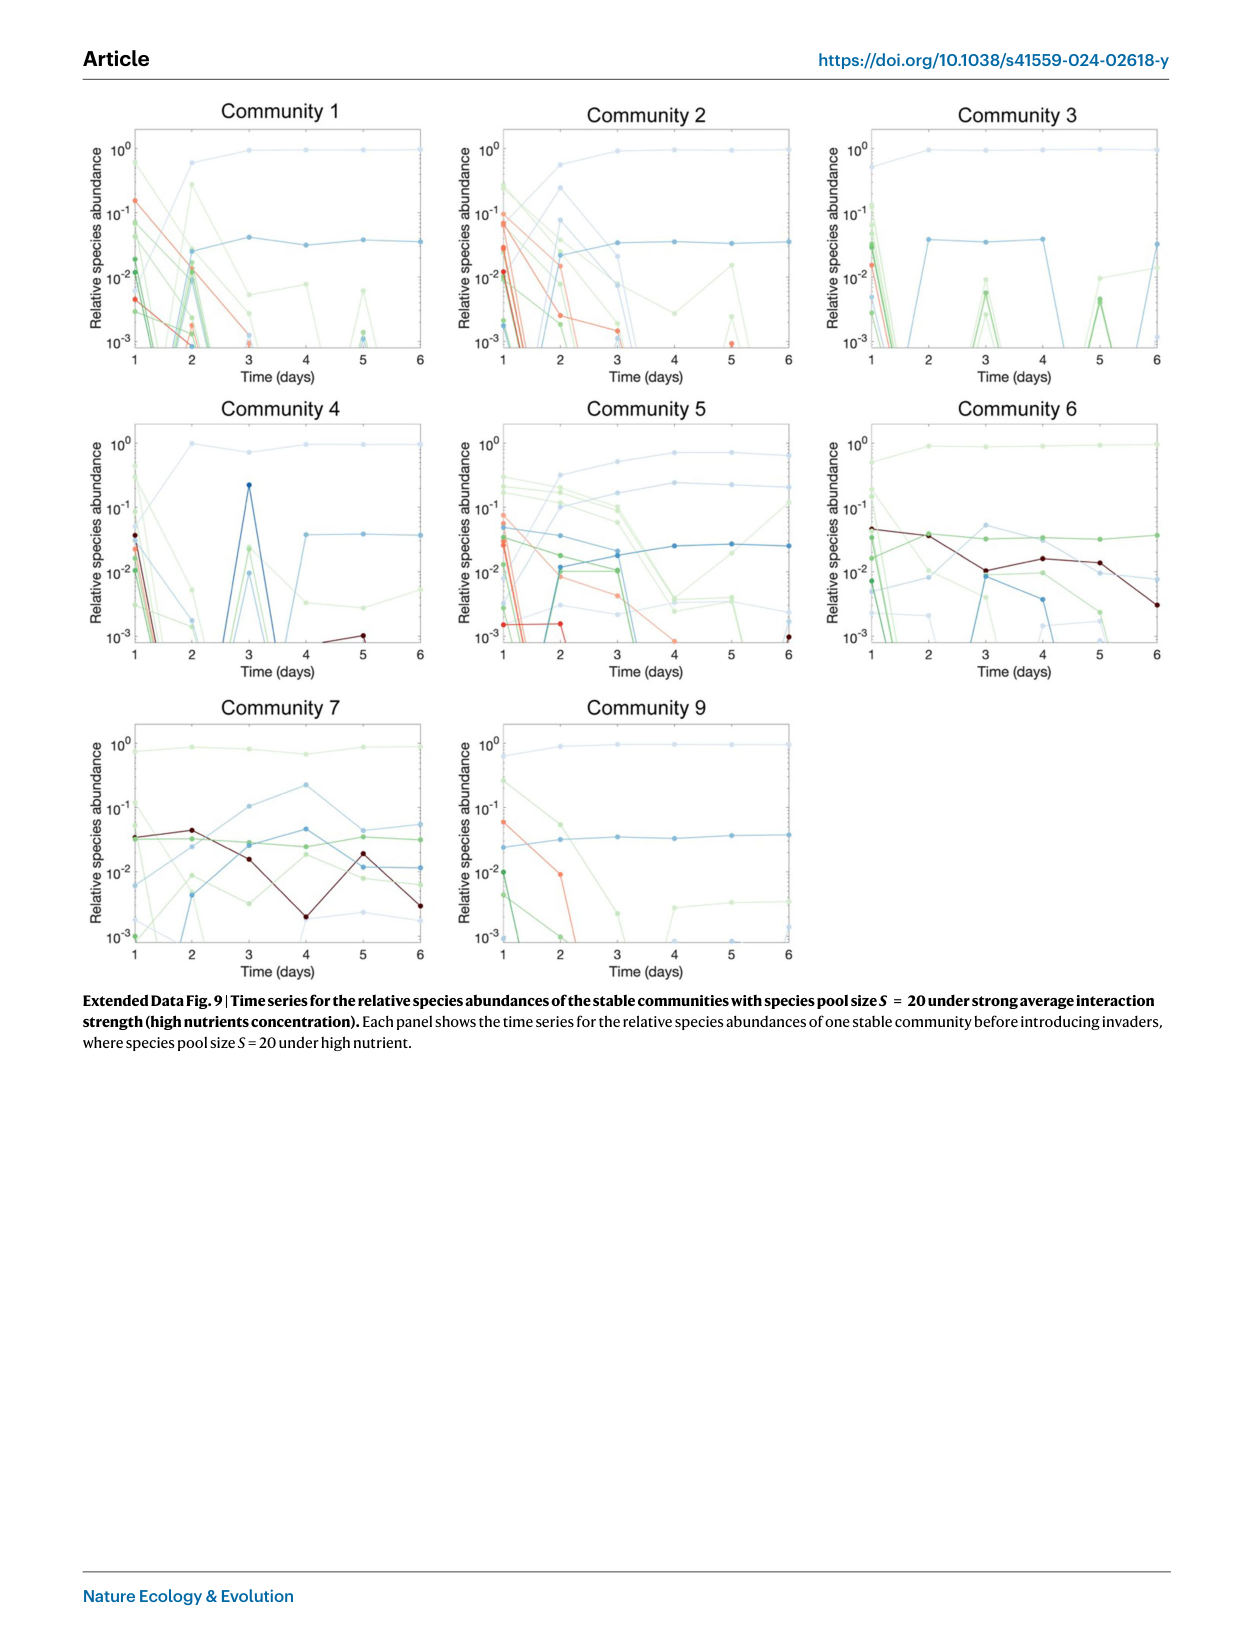 涨落群落的多样性约为稳定群落的两倍。入侵测试的差距更悬殊:涨落群落 61 次测试成功 8 次(13%±4%),稳定群落 60 次测试只成功 1 次(1.7%±1.7%),差约 8 倍(P=0.016)。
第二组对照的是两个控制参数。论文靠调培养基里葡萄糖和尿素的浓度改变相互作用强度:浓度越高,细菌对培养基的改造越剧烈(比如 pH 变化),竞争越强。低营养(弱相互作用)下,15 个群落、39 次测试,成功率 56%±8%;高营养(强相互作用)下,25 个群落、120 次测试,成功率 7%±2%,低 8 倍(P=4.5×10⁻¹³)。物种池从 S=20 减到 S=12(都在低营养下),成功率从 56%±8% 升到 85%±6%(P=0.007)。图 p14 把全部入侵测试画成结果矩阵:横轴入侵菌、纵轴群落,蓝色成功、灰色失败、白色未测,营养越高、池越大,蓝色越稀疏。
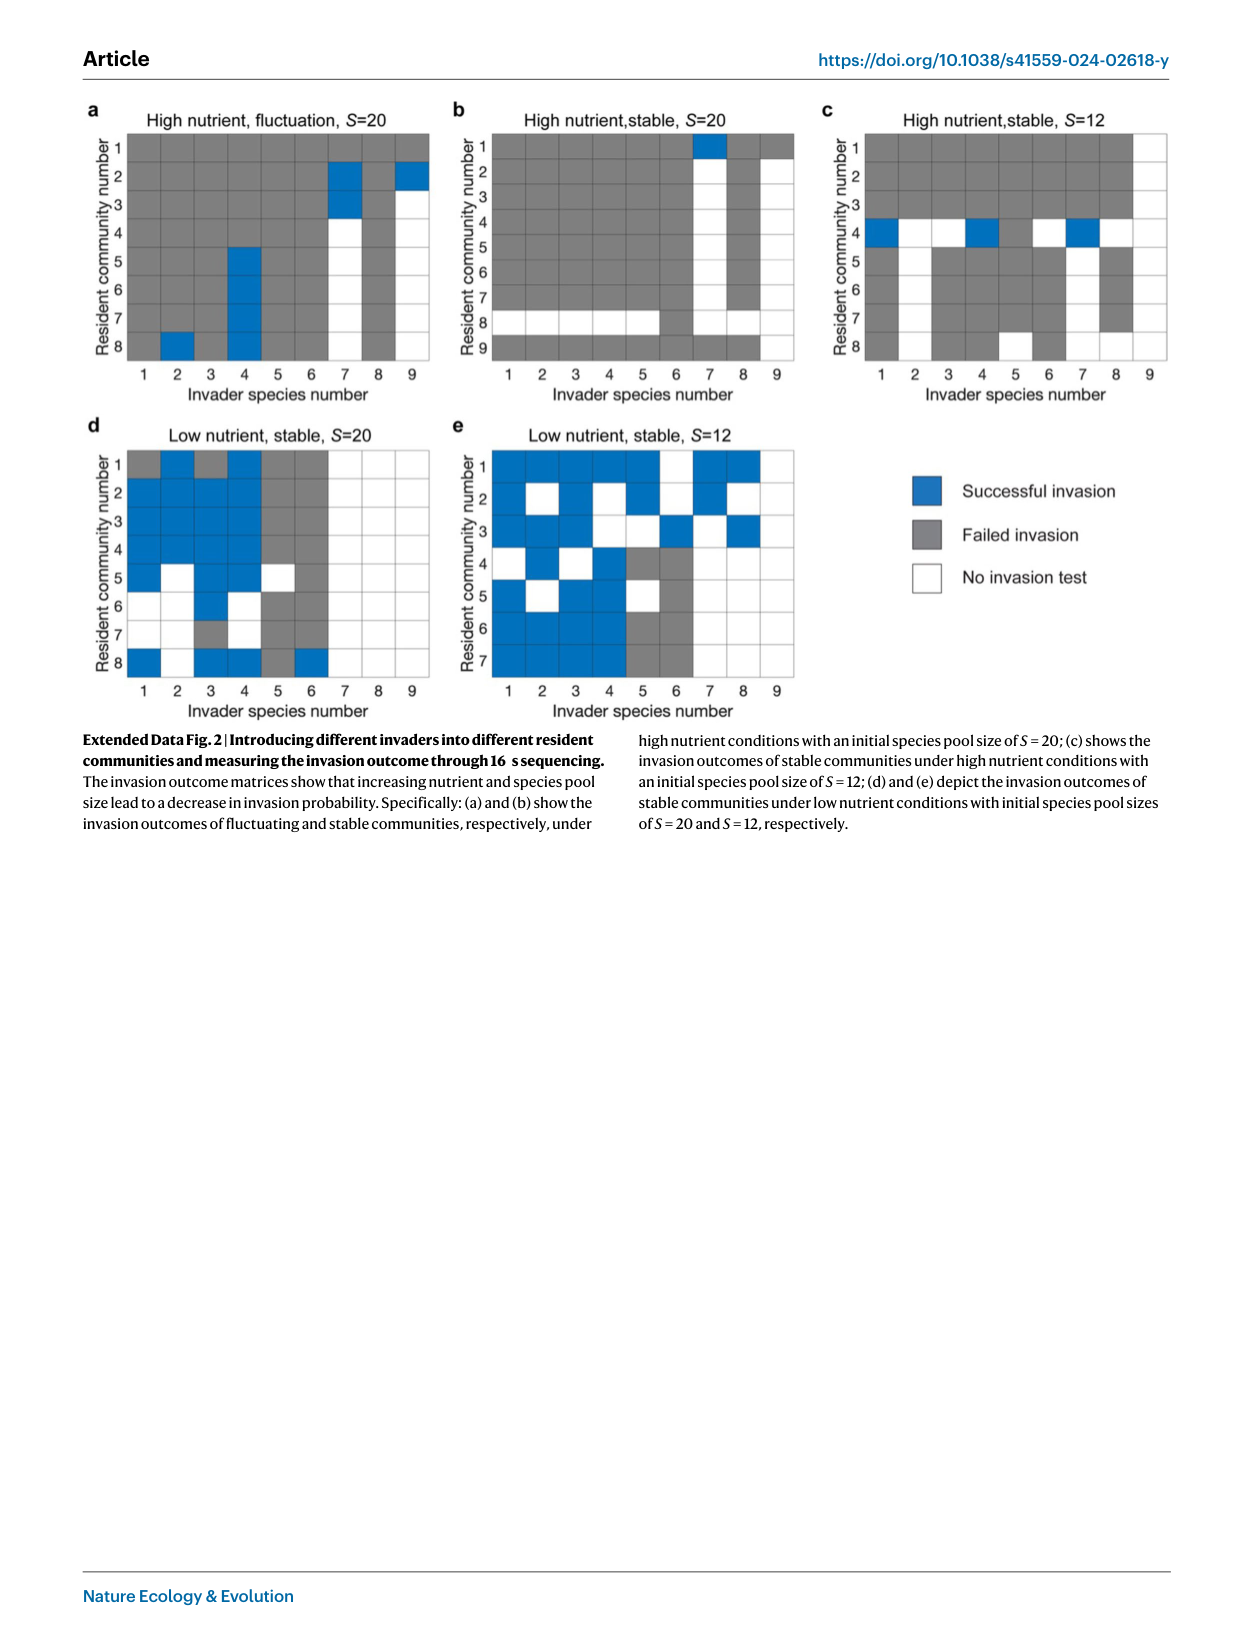 模型的定性预测和实验方向完全一致。
第三组是统一视角。把所有实验群落合在一起,横轴存活分数(第 6 天存活物种数除以 S)、纵轴入侵成功率,两者强正相关,r=0.77(P=3.4×10⁻⁷)。涨落群落、稳定群落、强弱相互作用、不同池大小,全部落在这条线附近。反过来说,单独用多样性预测就会出错:多样性随池大小增加时群落更抗入侵(支持生物抗性假说),多样性随涨落动力学或弱相互作用增加时群落反而更可入侵——方向完全取决于多样性从哪来,把多样性归一化成存活分数后分歧消失。
这张图上还有两个细节。其一,高营养(强相互作用)的群落点大多在对角线下方,即入侵成功率低于存活分数:装配阶段从池里随机抽的物种,存活概率高于后期进来的入侵种。这是优先效应(priority effect)——强相互作用下存在多个替代稳态,先到者占住位置,后来者从小丰度起家很难挤进去。模型里优先效应出现在替代稳态和极限环区,混沌区反而没有,因为混沌是遍历的,历史依赖被抹平。其二,成功入侵的冲击随相互作用增强而变大:生物量倍数变化从弱相互作用的 1.15±0.03 升到强相互作用的 2.9±0.8(成功入侵样本 n=51 对 n=11,P=2.9×10⁻⁵),物种组成变化从 39%±2% 升到 53%±6%(P=0.0038)。强相互作用群落难入侵,但一旦成功,对原有群落的重排更剧烈。
最后是入侵者侧的证据。单培养生长率几乎预测不了入侵成败:最成功的 Pseudomonas 4 号(35 次成功 16 次)和 Enterobacterales 7 号(11 次成功 6 次)单培养生长都很普通;单培养最快的 Bacillus 6 号只在 37 次里成功 2 次;带强 Allee 效应(小接种量无法起步)的 2 号和 3 号偶尔也能入侵成功。结论:先看群落状态,再看群落参数,入侵者性状排在后头。
对 ML 的启发:新任务进入模型,是同一个动力学问题
把映射摆出来:居民群落对应已经训练好的模型,物种对应已学到的技能或子任务,物种池对应模型容量与预训练任务广度,新物种入侵对应往模型里加一个新任务,相互作用强度对应任务之间的干扰或梯度冲突强度。那么论文的三条结论直接翻译成 ML 语言:第一,稳定态对应收敛、权重静止、表示不再漂移的模型,涨落态对应表示持续漂移、训练未完全静止的模型——后者更容易吸收新任务,与持续学习文献里的「塑性损失」现象同向:保持可塑性的网络才能学会新技能。第二,任务间干扰强的模型(对应强相互作用群落)加新任务难,但一旦加进去,对已有表示的重塑更大——和任务干扰导致的灾难性遗忘及其补救难度是同一类权衡。第三,优先效应对应顺序效应:先训练的任务塑造损失景观,让后到的任务从小权重起步困难,这解释了持续学习里课程顺序敏感性的来源——生态学先给了一套可量化的语言(存活分数、相图、优先效应区),把「可塑性、稳定性、干扰强度」放进同一张相图。
局限
这篇论文的证据边界要划清楚。第一,实验只覆盖合成群落和每日序列稀释批培养这一种体系,菌株库 80 株来自有限生境,能否外推到自然群落、更大时空尺度和其他生物类群,论文自承需要未来工作。第二,入侵效应只测了生物量和物种组成,没有测功能层面,功能冗余可能掩盖「组成变了、功能没变」。第三,实验处在大种群密度区,涨落被归为确定性动力学;小种群下 demographic noise 驱动的随机涨落和替代稳态间的随机跃迁都没有覆盖。第四,模型用均匀随机相互作用矩阵,忽略真实网络的结构和促进性相互作用,pH 介导的相互作用只在补充模型里单独处理。第五,「入侵概率≈存活分数」的通用线在低存活分数区有系统性偏差,正好落在强相互作用的优先效应区,说明它在该区域只是近似。第六,成败判定依赖 8×10⁻⁴ 阈值和第 12 天观察终点,更长时间的持续定殖未被追踪。
用实验 + 广义 Lotka–Volterra 模型证明:居民群落的集体动力学状态(稳定 / 涨落 / 多稳态)是入侵成败的首要预测变量——涨落群落比稳定群落可入侵性高约 8 倍(13%±4% vs 1.7%±1.7%,同为 S=20 池、高营养);强相互作用与更大物种池都降低入侵概率;把多样性归一化为「存活分数」后,所有条件下入侵概率≈存活分数(r=0.77),统一了生态学几十年的「多样性—可入侵性」之争。
阅读提示
精读深度:泛读
清单提示:原文提示:入侵成败由 resident community 的集体动力学 regime 预测——涨落(fluctuating)vs 稳定(stable)、相互作用强度、多样性—可入侵性关系;读完思考「新任务进入已训练模型」的动力学类比。
问题
要解决什么:预测一个新物种(如 C. difficile 这类致病菌)能否入侵一个已有的微生物群落、以及入侵成功后对居民群落造成多大影响。文献长期分裂为两派:一派看入侵者性状(单培养生长率、扩散能力、初始种群大小),一派看居民群落属性(组成、多样性、生物抗性假说)。本文要回答:居民群落里到底哪个可测特征能统一预测入侵成败与入侵效应,以及为什么「多样性—可入侵性」的关系在不同研究里方向相反。
为什么 prior work 不够:物种性状路线效果差:本文实测单培养生长率几乎不预测入侵成败(生长最快的 Bacillus 6 号只在 37 次测试里成功 2 次)。多样性路线不稳定:生物抗性假说(Elton 传统)在部分数据成立、在部分数据失败,因为「多样性」可以来自不同的源头——物种池大小、相互作用强度、动力学状态——这三条路径给出相反的相关方向。而居民群落「是处于平衡还是持续涨落」这个维度,在主流研究中被当成环境噪音忽略,几乎没有实验直接把它当预测变量。May 1972 的随机矩阵理论只回答「何时失稳」,没有把不同动力学区域分别与入侵概率、入侵效应挂钩。
输入 / 输出
输入
| 名称 | 类型 | 说明 |
|---|---|---|
| 合成微生物群落(居民群落) | 80 株细菌菌株库(土壤、树叶、查尔斯河水)抽取的 S=12 或 S=20 物种池 | 17 个独立居民群落(S=20、高营养),加低营养与 S=12 的对照组;每天序列稀释传代 + 物种池扩散培养 6 天完成装配 |
| 入侵者 | 物种池外的 9 种随机入侵菌 | 第 6 天加入,之后继续每日传代 + 全部物种扩散共 6 天;每个居民群落做 7–9 次独立入侵测试 |
输出
| 名称 | 类型 | 说明 |
|---|---|---|
| 入侵成败 | 二分类(成功 / 失败) | 第 12 天入侵菌相对丰度 > 8×10⁻⁴ 阈值记为成功(阈值贴合 16S 测序检测极限,见补充方法) |
| 入侵效应 | 两个标量 | 入侵前后群落总生物量倍数变化(OD600 时序)+ 物种组成变化比例(对照无入侵群落,用 16S 存活物种重叠度计算) |
| 居民群落状态变量 | richness / survival fraction / 动力学 regime | 装配结束(第 6 天)存活物种数 richness、存活分数 = richness/S、群落归类为稳定或涨落(8/17 涨落、9/17 稳定) |
数据集
| 数据 | 规模 | 备注 |
|---|---|---|
| 合成微生物群落实验(自建) | 80 株细菌菌株库;17 个 S=20 居民群落;约 9 种入侵菌;高/低营养两种培养基;S=12 对照组 | 16S rRNA 测序测物种相对丰度,OD600 测总生物量;入侵测试总数:高营养(强相互作用)n=120、低营养(弱相互作用)n=39、S=12(低营养)n=34 |
| 广义 Lotka–Volterra 模型模拟(自建) | 每个参数组 1000 次模拟;随机相互作用矩阵 αij ~ U[0, 2⟨αij⟩],αii=1 | 入侵者在 t=10³ 引入,模拟至 t=2×10³;时间单位 1/r,r=1;MATLAB Runge–Kutta,步长 0.05;物种灭绝/稳定阈值 8×10⁻⁴ |
架构(摘要)
主干与结构
backbone:generalized Lotka–Volterra + dispersal(dN_i/dt = N_i(1 − N_i − Σ_{j≠i} α_ij N_j) + D(1 − N_i))
参数:N_i 归一化到承载量的丰度;α_ij ~ U[0, 2⟨αij⟩](α_ii=1);D 为扩散率;模拟时长 t∈[10³, 2×10³],1000 次模拟/参数组
类型:n/a 实验+理论生态学(无神经网络结构)
关键组件
- 相图:⟨αij⟩ × S 参数平面,两条边界——物种存活边界(虚线,跨过开始有物种灭绝)与稳定性边界(实线,跨过群落失稳进入涨落)
- 三种 regime:稳定态 / 涨落态(极限环或混沌,由相互作用自发产生)/ 强相互作用多稳态(替代稳定态)
- 统一预测变量:survival fraction = 存活物种数 / S(= richness/S),实验 r=0.77 与入侵概率正相关
为什么这样设计
论文的「模型」是动力学方程而非神经网络:广义 Lotka–Volterra 加物种池扩散项,随机相互作用矩阵继承 May 的随机矩阵传统,只需物种池大小 S 与平均相互作用强度 ⟨αij⟩ 两个群落级参数就能复现实验中的稳定/涨落/多稳态区域,并逐条给出可检验的入侵预测。
→ 详见 Architecture tab。
关键结果
| 指标 | 值 | 最强 baseline | setup |
|---|---|---|---|
| 涨落 vs 稳定群落的入侵成功率 | 13%±4%(8/61 次测试) | 稳定群落 1.7%±1.7%(1/60 次测试),约 8 倍差距(P=0.016) | 17 个合成群落、物种池 S=20、高营养(强相互作用),每群落 7–9 次独立入侵测试,第 12 天相对丰度阈值 8×10⁻⁴ |
| 强 vs 弱相互作用下的入侵成功率 | 高营养(强相互作用)7%±2% | 低营养(弱相互作用)56%±8%,差 8 倍(P=4.5×10⁻¹³) | 15 个低营养群落 + 25 个高营养群落,约 9 种入侵菌;n=120(高营养)、n=39(低营养);相互作用强度靠培养基葡萄糖/尿素浓度调节 |
| 物种池大小对入侵成功率的影响(低营养) | S=12 → 85%±6% | S=20 → 56%±8%,提升约 1.5 倍(P=0.007) | 稳定群落、弱相互作用(低营养);n=34(S=12)、n=39(S=20) |
| 入侵成功率 vs 存活分数的相关性(统一视角) | r=0.77(P=3.4×10⁻⁷) | 单独用 richness 预测时方向随多样性来源变号:随池大小增加→负相关,随涨落/弱相互作用增加→正相关(r=0.5 且只在固定池大小内成立) | 全部实验群落汇总(不同营养、池大小、动力学状态);存活分数 = 第 6 天存活物种数 / S |
| 成功入侵对居民群落的效应(强 vs 弱相互作用) | 生物量倍数变化 2.9±0.8;物种组成变化 53%±6% | 弱相互作用 1.15±0.03(生物量)、39%±2%(组成)(P=2.9×10⁻⁵ / P=0.0038) | 成功入侵样本 n=11(高营养)、n=51(低营养);组成变化对照无入侵群落,用 16S 存活物种重叠度计算 |
| 入侵者单培养生长率能否预测入侵成败 | 无显著相关 | 最成功的两种(Pseudomonas 4 号 16/35、Enterobacterales 7 号 6/11)单培养生长率普通;单培养最快的 Bacillus 6 号仅 2/37 | 9 种入侵菌 × 全部居民群落;单培养生长率在高低两种营养下分别测定 |
Insights
- 决定入侵成败的首要因素在居民群落一侧:它的集体动力学 regime(稳定/涨落/多稳态),先于入侵者性状(单培养生长率几乎无效)与孤立看多样性(Skill 提示考点:regime 预测)。
- 多样性—可入侵性之争的统一解:把 richness 归一化为 survival fraction(richness/S)后,实验与模拟里所有条件下入侵概率≈存活分数;对应 alpha/beta/gamma 多样性映射后,可入侵性与 beta 多样性负相关。
- 强相互作用下涌现优先效应(priority effect):入侵成功率 < 存活分数,源于替代稳态/极限环让先到者压制后到者;混沌区因遍历性没有此效应。成功入侵的冲击反而随相互作用增强而变大(2.9±0.8 vs 1.15±0.03 倍生物量;53%±6% vs 39%±2% 组成变化)。
vs 同类工作
- vs May 1972 随机矩阵复杂度—稳定性理论:同属随机相互作用矩阵传统,但 May 只回答「何时失稳」;本文把稳定/涨落/多稳态三个 regime 分别与入侵概率、优先效应、入侵效应挂钩,并给出实验可测的统一预测变量(survival fraction)。
- vs 生物抗性假说(Elton 传统):该假说只在「多样性随物种池大小增加」这一条路径成立(本文 S=12→20 时成功率 85%→56%);当多样性随涨落动力学或弱相互作用增加时,群落反而更可入侵,实验给出相反方向。
- vs 存储效应 / 资源波动假说(Chesson 传统):传统把涨落归因于环境外力(季节、扰动);本文的涨落由群落内部相互作用自发产生(极限环/混沌),无需外部强迫。
- vs 同组前作 Hu et al. PNAS 2022(emergent phases of ecological diversity and dynamics):前作建立「物种池大小+相互作用强度→相图」;本文在其上补全入侵实验、优先效应定位与存活分数通用线,把相图升级为入侵预测器。
局限
- 实验只覆盖合成群落与单一培养体系(每日序列稀释批培养),菌株库 80 株来自有限生境;能否外推到自然群落、更大时空尺度与其它生物类群,论文自承需要未来工作。
- 入侵效应只测了总生物量与物种组成,未测功能层面;功能冗余可能让「组成变了、功能没变」的情况被漏掉,论文明确承认无法排除。
- 实验在大种群密度区进行,涨落被归为确定性动力学(极限环/混沌);小种群下 demographic noise 驱动的随机涨落、以及替代稳态间的随机跃迁都没有覆盖。
- 理论用均匀随机相互作用矩阵 U[0, 2⟨αij⟩],忽略真实网络的结构与促进(正)相互作用等细节;pH 介导的相互作用只在补充模型中单独处理,主模型是平均场式的简化。
- 「入侵概率≈存活分数」通用线在低存活分数区存在系统性偏差(强相互作用的优先效应区),说明该统一关系在强相互作用区间只是近似。
- 成败判定依赖相对丰度阈值 8×10⁻⁴ 且观察终点是第 12 天,更长时间的持续建立(是否真正定殖)未被追踪;阈值本身也会影响成功率口径。
可复现性
- code:模拟在 MATLAB 中完成(Runge–Kutta,步长 0.05,每参数组 1000 次),参数细节见 Methods;未见独立开源代码库
- data:实验数据公开于 Dryad(doi:10.5061/dryad.8gtht76xz);16S 测序与 OD600 原始时序见补充材料
- benchmark:无标准 benchmark;可比数字为 17 个合成群落 × 7–9 次入侵测试、高营养 n=120 / 低营养 n=39、S=12 对照组 n=34
主干与结构
backbone:generalized Lotka–Volterra + dispersal(dN_i/dt = N_i(1 − N_i − Σ_{j≠i} α_ij N_j) + D(1 − N_i))
参数:N_i 归一化到承载量的丰度;α_ij ~ U[0, 2⟨αij⟩](α_ii=1);D 为扩散率;模拟时长 t∈[10³, 2×10³],1000 次模拟/参数组
类型:n/a 实验+理论生态学(无神经网络结构)
关键组件
- 相图:⟨αij⟩ × S 参数平面,两条边界——物种存活边界(虚线,跨过开始有物种灭绝)与稳定性边界(实线,跨过群落失稳进入涨落)
- 三种 regime:稳定态 / 涨落态(极限环或混沌,由相互作用自发产生)/ 强相互作用多稳态(替代稳定态)
- 统一预测变量:survival fraction = 存活物种数 / S(= richness/S),实验 r=0.77 与入侵概率正相关
为什么这样设计
论文的「模型」是动力学方程而非神经网络:广义 Lotka–Volterra 加物种池扩散项,随机相互作用矩阵继承 May 的随机矩阵传统,只需物种池大小 S 与平均相互作用强度 ⟨αij⟩ 两个群落级参数就能复现实验中的稳定/涨落/多稳态区域,并逐条给出可检验的入侵预测。
入侵结果矩阵:不同入侵者 × 不同居民群落
原文 caption:Introducing different invaders into different resident communities and measuring the invasion outcome through 16S sequencing. The invasion outcome matrices show that increasing nutrient and species pool size lead to a decrease in invasion probability. (a)(b) fluctuating and stable communities, S=20, high nutrient; (c) stable communities, S=12, high nutrient; (d)(e) stable communities, S=20 and S=12, low nutrient.
五个小矩阵把全部入侵测试画出来:横轴是入侵菌编号,纵轴是居民群落编号,蓝色=入侵成功、灰色=失败、白色=未测。从上到下、从左到右比较,营养浓度(相互作用强度)升高、物种池从 S=20 缩到 S=12,蓝色格子越来越稀疏,直接支撑「相互作用越强、池越大,入侵概率越低」这个核心论断(实验数字:高营养 7%±2%、n=120;低营养 56%±8%、n=39;S=12 低营养 85%±6%、n=34)。
涨落群落的物种相对丰度时序(S=20,高营养)
原文 caption:Time series for the relative species abundances of the fluctuating communities with species pool size S=20 under strong average interaction strength (high nutrients concentration). Each panel shows the time series of one fluctuating community before introducing invaders.
8 个涨落群落的每个物种相对丰度随时间(第 1–6 天)的变化,纵轴对数刻度。要点是所有物种持续起伏、没有固定在某个组成上——这是「涨落 regime」的实验证据(由强相互作用自发产生,对应模型里极限环/混沌区)。这类群落同时更丰富、也更容易被入侵(13%±4%,61 次测试成功 8 次)。
稳定群落的物种相对丰度时序(S=20,高营养)
原文 caption:Time series for the relative species abundances of the stable communities with species pool size S=20 under strong average interaction strength (high nutrients concentration). Each panel shows the time series of one stable community before introducing invaders.
同条件下 9 个稳定群落的丰度时序:快速收敛后物种相对丰度基本不动。与 p20 的涨落群落形成对照——同一批参数(S=20、高营养)下两种 regime 并存,而稳定群落入侵成功率只有 1.7%±1.7%(60 次测试成功 1 次),说明区分「稳定 vs 涨落」对预测入侵成败很关键。
🎧 音频版
时长 21:34 · Edge TTS
群落涨落决定入侵成败:一篇把「动力学状态」变成预测变量的生态学论文(对话版)
开场:今天聊微生物群落里的「入侵」
小播:老播,这期讲哪篇论文?
老播:讲 2025 年发在 Nature Ecology & Evolution 上的一篇生态学工作,题目叫《群落级动力学状态预测微生物群落的入侵成功与影响》,作者是 MIT 的 Jiliang Hu 和 Jeff Gore,加上 CIRAD 的 Matthieu Barbier 和 Technion 的 Guy Bunin,2025 年 3 月刊出,第 9 卷 406 到 416 页。
小播:入侵?是说打仗吗?
老播:生态学里的入侵,指一个新物种进入一个已经存在的群落,看它能不能活下来、站稳脚跟。离我们最近的一个例子是 C. difficile,这种致病菌侵入肠道菌群之后,会引起腹泻甚至结肠炎。这两个问题在医学和生态治理里都是刚需:预测肠道菌群会不会被耐药菌占领、预测引入的益生菌或者生物防治菌能不能落地。难点在于,成败都很难提前判断。
小播:我们平时做 ML,也不做生态,为什么值得花一期聊它?
老播:因为「一个新任务进入一个已经训练好的模型」和「一个新物种进入一个群落」,在动力学上高度同构。这篇论文给了我们一套可量化的语言。先把结论预告,后面一条条用数字钉住:决定入侵成败的首要因素,落在居民群落这一侧,具体说是它的集体动力学状态——群落是稳定在某个组成上,还是一直在涨落。涨落群落更容易被入侵,也更多样;相互作用越强、物种池越大,越难入侵;而一旦在强相互作用群落里入侵成功,对原有群落的冲击反而更大。论文标题里的 collective dynamical regimes,说的就是「用集体动力学状态来做 regime 预测」。说得直白一点,这篇的工作是:给群落做「体检」,读出它处在哪种动力学状态,再用这个状态加两个参数预测入侵。体检指标比盯着入侵者本身管用。
背景:入侵生态学吵了几十年
小播:先铺垫,以前的人怎么研究入侵?
老播:大致分两派。一派盯着入侵者自己:生长率、扩散能力、初始种群大小,还有「天敌释放」这类假说,说入侵种在新环境里少了天敌所以容易扩张。另一派盯着居民群落:组成和多样性。最有名的就是 Elton 1958 年提出的生物抗性假说——高多样性群落资源利用更充分、空位更少,新物种钻不进去。这个假说在宏观生态和微生物领域都验证过很多次,结果时灵时不灵。除了生物抗性,还有存储效应和资源波动假说,认为环境扰动会在特定时期给入侵者开窗口。这些假说各自都能解释一部分数据,合在一起却互相矛盾。矛盾甚至出现在同一批研究里:换一种方式提高群落多样性,多样性—可入侵性的方向就翻过来。
小播:卡在哪里?
老播:卡在三个变量纠缠。多样性容易测,但它和可入侵性的关系方向不稳定;物种相互作用重要,但很难直接量化;还有一个更少被提起的维度——居民群落自身的动力学状态:它们到底停在平衡点附近,还是一直在涨落?主流研究基本默认群落处于稳定平衡,把涨落当成环境扰动带来的噪音。1972 年 Robert May 用随机矩阵理论证明了:物种越多、相互作用越强,随机生态网络越容易失稳。Gore 组 2022 年发在 PNAS 上的前作往前推了一步:用 80 株土壤细菌搭合成群落,发现物种池大小和相互作用强度这两个参数,可以把群落划进少数几个定性不同的动力学区域——稳定、涨落,还有强相互作用下的多稳态。本文的切口,就是在这张相图上加上「入侵」这个实验操作。
小播:为什么用微生物做实验?
老播:因为微生物系统是理想试验场:群落可以人工合成,池大小、营养条件可独立调节,同一个群落能重复做很多次入侵测试,野外大尺度群落给不了这种可控性。
小播:所以这篇的位置,是拿「动力学状态」当预测变量。
老播:对,而且实验和理论对照着做。它把入侵生态学从物种性状的争论,拉到一个只有两三个群落级参数的相图上。
核心思想:三种动力学状态,加一个统一变量
小播:「动力学状态」具体指什么?听众里很多人没上过生态课。
老播:只需要记住三种状态。第一种稳定态:群落装配完,物种丰度固定在一个组成上,不再随时间变。第二种涨落态:没有外界扰动,群落内部的相互作用自己推动丰度持续波动,可以是极限环,也可以是混沌。第三种多稳态:强相互作用下,同样条件群落可以停在几个不同的稳定组成上,停在哪个取决于历史。这篇论文的核心主张:一个群落的可入侵性,先看它落在哪个状态,然后才轮到相互作用强度和物种池大小。
小播:三种状态怎么定量预测?得有模型吧。
老播:有,广义 Lotka–Volterra 模型加一个物种池扩散项,写出来是:
dN_i/dt = N_i(1 − N_i − Σ_{j≠i} α_ij N_j) + D(1 − N_i)
先给预期:这个式子回答「每个物种的丰度随时间怎么变化」。逐项看:N_i 是物种 i 的丰度,先归一化到它自己的承载量,所以括号里第一项表示自身增长受承载量限制;α_ij 是物种 j 对物种 i 的抑制强度,自己对自己的 α_ii 等于 1;求和项把其余所有物种的竞争压力叠在一起;D 是扩散率,模拟自然界里物种池不断往群落补充个体。相互作用矩阵随机采样,α_ij 从均匀分布 U[0, 2⟨α⟩] 里抽,⟨α⟩ 是平均相互作用强度。随机矩阵这个用法继承自 May,好处是抓住物种之间的异质性,又不用假设具体的群落结构。
小播:模型扫出来什么?
老播:两个控制参数——平均相互作用强度 ⟨α⟩ 和物种池大小 S——把参数平面切成几个区域,中间有两条边界:一条物种存活边界,跨过去开始有物种灭绝;一条稳定性边界,跨过去群落失稳、出现涨落。两条边界的含义要说清楚:存活边界以内,池里的物种大多能活下来;跨过它,一部分物种在装配过程中灭绝。稳定性边界以内群落收敛;跨过它,稳态失稳,丰度开始周期性或者混沌地波动。实验里高营养加 S=20 的群落正好落在边界附近,所以 17 个群落里两种状态都有,8 个涨落、9 个稳定,给实验对比提供了天然的对照。模型在这个相图上的预测是:相同条件下,涨落群落的入侵概率高于稳定群落;⟨α⟩ 和 S 增大,入侵概率都下降;把所有群落按存活分数归一化之后,入侵概率和存活分数几乎落在同一条线上。
小播:存活分数又是什么?
老播:装配结束后,初始物种池里活下来的物种比例,也就是 richness 除以 S。它是全文的统一钥匙,后面实验部分会看到它的表现。在展开实验前,先插一段我们读出来的模型类比:把「群落」换成「已经训练好的模型」,「物种」换成「已学到的技能或子任务」,「新物种入侵」就是「往模型里加一个新任务」。稳定态对应模型收敛、权重静止、表示不再漂移;涨落态对应表示持续漂移、训练没有完全静止的状态。相互作用强度对应任务之间的干扰、梯度冲突的强度;物种池大小对应模型容量和预训练任务的广度。
小播:先解释一个疑问——为什么归一化成存活分数就能统一?
老播:因为存活分数同时吸收了三条路径的信息。物种池变大,存活分数下降;相互作用变强,装配后活下来的物种变少;同参数下涨落群落比稳定群落保留更多物种。多样性这个分子单独看会被分母干扰:同样存活 6 个物种,池大小是 20 还是 12,代表的容纳能力完全不同。把分母 S 除掉,剩下的才是「这个群落实际能稳定容纳多少物种」的信息,入侵概率跟它走。
小播:这个映射我大概懂了,它对应 ML 里的哪些现象?
老播:模型说「涨落群落更能吸收新物种」,翻译过来就是:持续漂移、保持可塑性的模型更容易吸收新任务。持续学习文献里有对应的实证,Dohare 等人在 2024 年系统展示了「塑性损失」:网络在固定任务上反复训练之后,即使旧任务表现不变,学新任务的能力也会下降。把那里的「反复训练后收敛」换成这里的「群落落入替代稳态」,结构是一样的:系统越静止,对新输入越封闭。反过来,神经科学里发现的表示漂移——成熟动物在行为稳定时皮层表征仍然缓慢变化——对应这里的涨落态,生物体用持续的动力学换取了适应性。「强相互作用群落难入侵、一旦成功冲击大」,对应任务间强干扰的模型加新任务难,加进去之后对旧表示的重塑也大。生态学这篇的好处,是把这两种状态放进同一个参数平面,给出边界和定量预测;这也是「新任务进入模型」这个类比里最值得搬走的部分。
关键实验:三组实验把预测钉死
小播:模型讲完了,实验怎么做的?
老播:实验平台这样搭:80 株从土壤、树叶、查尔斯河水分离的细菌做菌株库,构造 17 个合成居民群落,每个物种池大小 S=20,高营养培养基。培养方式是每天序列稀释传代,同时从物种池补充扩散个体,模拟自然迁入。装配 6 天后,每个群落做 7 到 9 次独立的入侵测试,每次随机挑一种池外的入侵菌加进去,再培养 6 天,16S 测序看结果。成败判定:第 12 天入侵菌相对丰度超过 8×10⁻⁴,这个阈值贴合 16S 测序的检测极限。测量指标分工:16S 测序给细菌做「身份证」,按 16S rRNA 基因序列把读段归到各物种得相对丰度;OD600 测 600 纳米波长光密度,反映总生物量。一个看「谁在」,一个看「总量多少」。
小播:17 个群落乘上十几次测试,工作量不小。
老播:结果分三层。第一层,动力学状态。17 个群落里 8 个持续涨落、9 个稳定。图里能直接看到差别:涨落群落的物种相对丰度时序一直在起伏,稳定群落收敛后基本不动。涨落群落的多样性大约是稳定群落的两倍。入侵测试的差距更悬殊:涨落群落 61 次测试成功 8 次,成功率 13%±4%;稳定群落 60 次测试只成功 1 次,1.7%±1.7%。差约 8 倍。所以同样物种池、同样营养条件下,更丰富的群落反而更容易被入侵,正相关系数 r=0.5。这和「多样性抗入侵」的预期方向相反。
小播:相互作用强度和物种池大小这两根旋钮呢?
老播:第二层,两个控制参数。论文靠调培养基里葡萄糖和尿素的浓度来调相互作用强度:浓度越高,细菌改造培养基越剧烈,比如 pH 变化,竞争就越强。低营养、弱相互作用下,15 个群落、39 次测试,成功率 56%±8%;高营养、强相互作用下,25 个群落、120 次测试,成功率 7%±2%,低 8 倍。把物种池从 S=20 减到 S=12,都在低营养下,成功率从 56%±8% 升到 85%±6%。图 p14 是完整的入侵结果矩阵:横轴入侵菌、纵轴群落,蓝色成功、灰色失败、白色未测。读这张图有个技巧:五个小矩阵对应不同的营养和池大小组合,看蓝色格子的密度就够了——密度高的是低营养或小池,密度低的是高营养或大池,整张图把「营养和池大小压制入侵」浓缩成一眼能看出的趋势。模型的定性预测和实验方向完全一致。
小播:模型预测和实验对上了几条?
老播:四条。模型说涨落群落更可入侵,实验是 13% 对 1.7% 的 8 倍差距;模型说相互作用强度增大、池大小增大会压低入侵概率,实验分别给出 8 倍和约 1.5 倍的变化;模型说存活分数是通用线,实验相关系数 0.77;模型说强相互作用下出现优先效应,实验里高营养群落的数据点确实都在对角线下方。
小播:8 倍这个差距记住了。那统一钥匙存活分数呢?
老播:第三层,统一视角。把所有实验群落放一起:横轴存活分数、纵轴入侵成功率,强正相关,r=0.77。涨落群落、稳定群落、强相互作用、弱相互作用、不同池大小,全落在同一条线上。反过来说,单独用多样性预测就会出错:多样性随池大小增加时,群落更抗入侵;多样性随涨落动力学或弱相互作用增加时,群落反而更可入侵。方向取决于多样性从哪来。归一化成存活分数之后,分歧消失。这就是这篇论文对「多样性—可入侵性」之争的答复:多样性单独看会骗人,存活分数才是那个稳定变量。
小播:这确实把争论统一了。还有别的发现?
老播:还有两个。第一个是优先效应。高营养、强相互作用的群落点大多在对角线下方,也就是入侵成功率低于存活分数。含义是:装配阶段从池里随机抽的物种,存活概率高于后期进来的入侵种。具体怎么发生的?强相互作用群落里,现有成员互相抑制、达成一个脆弱的平衡,后来者即使生长能力不差,从小丰度起步时也会被压制住,起不来;而装配阶段的物种一开始就在场、从大丰度竞争,所以存活概率更高。这种「先来后到」的差异就是优先效应。模型里它出现在替代稳态和极限环区域,混沌区反而没有——混沌是遍历的,历史依赖被抹平了。第二个是入侵效应:强相互作用下,一次成功入侵让群落生物量平均变化 2.9 倍,弱相互作用下只有 1.15 倍;物种组成变化 53% 对 39%,差异的效应量只有 0.14。强相互作用群落难入侵,但一旦成功,冲击更大。
小播:入侵者自己的性状呢?总得有点用吧。
老播:实验结果说基本没用。单培养生长率几乎预测不了入侵成败:Pseudomonas 4 号 35 次里成功 16 次,Enterobacterales 7 号 11 次里成功 6 次,它们的单培养生长率都很普通;Bacillus 6 号单培养长得最快,却只在 37 次里成功 2 次。还有两个种带强 Allee 效应——种群密度太低时个体难以存活繁殖,小接种量本来应该必死——偶尔也能入侵成功。所以判断入侵成败,先看群落状态,再看群落参数,入侵者性状排在后面。
谱系:它站在哪条线上
小播:放回谱系里,它处在什么位置?
老播:一条线串起来:最上游是 May 1972 年的随机矩阵理论,回答「随机相互作用的网络什么时候失稳」;中间是 Gore 组 2022 年 PNAS 的相图工作,把稳定、涨落、多稳态变成可实验测量的群落级状态;本文在这条线上补上入侵实验,给出统一预测变量存活分数,并把优先效应定位到相图的具体区域。和更早的微生物入侵研究比,那些工作大多在测单一因素,比如群落多样性或某一类相互作用;这篇把动力学状态、相互作用强度、池大小放进同一个框架,这是方法论上的差别。和生物抗性假说比,它划清了适用边界:只在多样性随池大小增加时成立;和存储效应、资源波动假说比,它这里的涨落来自群落内部相互作用,不需要环境外力。几十年方向相反的「多样性—可入侵性」证据,在这条线上被压缩成一个变量加一条线。
局限:这套框架的证据边界
小播:那它有没有站不住的地方?
老播:有,而且不止一处。第一,实验只覆盖合成群落和一种培养体系——每日序列稀释的批培养,菌株库 80 株来自有限生境,能不能外推到自然群落、更大时空尺度、其他生物类群,论文自己说需要未来工作。第二,入侵效应只测了生物量和物种组成,没测功能层面,代谢产物、抗性基因这类功能指标都缺席,功能冗余可能让「组成变了、功能没变」的情况被漏掉。第三,实验处在大种群密度区,涨落被归为确定性动力学;小种群下由随机出生死亡驱动的涨落、以及替代稳态之间的随机跃迁,都没有覆盖。第四,模型用均匀随机相互作用矩阵,忽略真实网络的结构和促进性相互作用,pH 介导的相互作用只在补充模型里单独处理。第五,「入侵概率约等于存活分数」这条通用线,在低存活分数区有系统性偏差,正好落在强相互作用的优先效应区。第六,成败判定依赖 8×10⁻⁴ 阈值和第 12 天这个观察终点,更长时间的持续定殖没有追踪。
小播:这些局限里,哪条最要紧?
老播:最要紧的是第三和第五合起来:这套框架在「确定性大种群、单一培养体系」里验证,而真实微生物群落的入侵,很多发生在种群小、噪音大的场合,那里正是通用线偏差最大的区域。框架的方向可能对,但边界画在哪里,要靠后续实验补齐。
收尾:记住三件事
小播:最后总结,记住哪三件事?
老播:第一,决定入侵成败的首要因素,在居民群落的动力学状态:涨落群落比稳定群落更容易被入侵,实验里是 13% 对 1.7%,差约 8 倍。第二,相互作用越强、物种池越大,越难入侵;但把多样性归一化成存活分数后,所有条件下入侵概率都约等于存活分数,相关系数 0.77,这就是「多样性—可入侵性」之争的统一解。第三,强相互作用群落难入侵,但一旦成功,对群落的冲击更大,还会出现先到者压制后到者的优先效应。
小播:回到「新任务进入模型」的类比,结论怎么落?
老播:判断一个新任务能不能学进去,先看模型当前的动力学状态:收敛静止,还是持续漂移;再看任务间干扰强度。持续漂移、保持可塑性的模型更容易吸收新任务,代价是稳定性;任务间干扰强的模型加新任务难,加进去之后对已有表示的重塑更大。顺序和时机之所以重要,和优先效应同源。另外要记住前提:这套结论是在「同一种环境、同一个物种池」里得到的,换环境关系可能重新洗牌,也提醒我们 ML 里度量可塑性要绑定任务分布。这篇论文给 ML 社区留下的,是一套把可塑性、稳定性、干扰强度放进同一张相图的语言,持续学习的问题可以在里面找到自己的位置。
小播:信息量够大,下期见。
老播:下期见。