Emergent phases of ecological diversity and dynamics mapped in microcosms(微宇宙中的生态相图)
> MIT · Jiliang Hu / Daniel R. Amor / Matthieu Barbier / Guy Bunin / Jeff Gore · Science 2022(正文基于 bioRxiv 预印本 2021.10.28.466339)
> 泛读卡片。目标读者:有 ML 基础、不熟悉生态复杂系统方向的人。
一句话定位
用细菌微宇宙对复杂生态群落的「相图」理论做第一次直接实验检验:物种池大小 S 和平均相互作用强度 <αij> 这两个粗粒化参数决定群落落在哪个动力学相,实验、模拟与解析理论三者在相序上一致;同一条件下,涨落群落反而比稳定群落保留更多存活物种,说明高多样性与持续涨落互相维持。这篇把「用少数统计量画复杂系统相图」的方法论从物理理论搬进真实生物系统,也为生成模型训练相图提供了现成的类比框架。
问题:多样性、动力学与稳定性之间缺一条统一定律
野外生态群落的多样性很高,动力学形态五花八门,从稳定平衡到周期性振荡再到混沌涨落都能观测到。生态学想解释三件事:什么决定了群落里有多少物种活下来、什么决定了它们的时间动力学、多样性如何与动力学互相影响。传统解释大多把外部环境驱动当作共同原因,实验室实验又只覆盖少数几个物种的小系统(捕食、竞争、交叉喂养的成对或三物种系统)。真正难住人的地方在参数:要预测一个几十上百物种群落的长期行为,理论上需要知道物种间相互作用网络的完整结构,而这些相互作用在野外几乎无法逐对估计。
Robert May 在 1972 年用随机矩阵理论给出过一个著名预言:物种越多、相互作用越强的群落,平衡点越容易不稳定。但这条线停留在「大而强的系统通常不稳定」,回答不了大群落如何形成,也没有描述失去稳定后的动力学形态。此后的理论工作(Bunin 2017 的随机相互作用 gLV 平均场、Roy 等 2020 的相变解析证明)补上了后半段,预测稳定全共存、稳定部分共存、持续涨落三个相会依次出现,还给出解析相界;但驱动参数在野外难测,一直缺一个能系统调节这两个参数、又能在实验室里观察几十上百个群落的实验平台。本文要补的正是这一环。
理论骨架:随机相互作用的广义 Lotka-Volterra 加传播
先给预期:下面的方程要回答「给定物种池大小和相互作用强度,群落长期会停在哪个宏观状态」。它是生态学最常用的广义 Lotka-Volterra(gLV)模型,加了传播项:
dN_i/dt = N_i(1 − Σ_j αij N_j) + D
逐项解释:N_i 是物种 i 的丰度,归一化到承载容量(单菌时稳定在 1);αij 是物种 j 对物种 i 生长的抑制强度,αii=1 表示自身调节;Σ_j αij N_j 是其它物种对 i 的总抑制,N_i 乘上这一项就是竞争导致的增长减速;D 是物种池向群落的传播速率,让灭绝的物种有机会重新进来。模拟中 αij 从均匀分布 U[0, 2<αij>] 抽样,因此相互作用强度分布完全由均值 <αij> 控制。
模拟结果给出三个相:相 I 稳定全共存(所有物种存活、丰度稳定);相 II 稳定部分共存(部分物种灭绝、幸存者稳定);相 III 持续涨落(物种丰度长期振荡)。相 II→III 的转变与群落矩阵特征值出现正实部一致,线性稳定性分析给出了客观判据。两个控制参数在相图上有两条分开的边界:存活边界(灰虚线)与稳定性边界(灰实线),因此「物种先灭绝、后失去稳定」成为可检验的顺序预测,并且这条顺序对相互作用强度分布与建模假设的选择保持稳健(Fig. S3),在资源显式模型里也能复现。
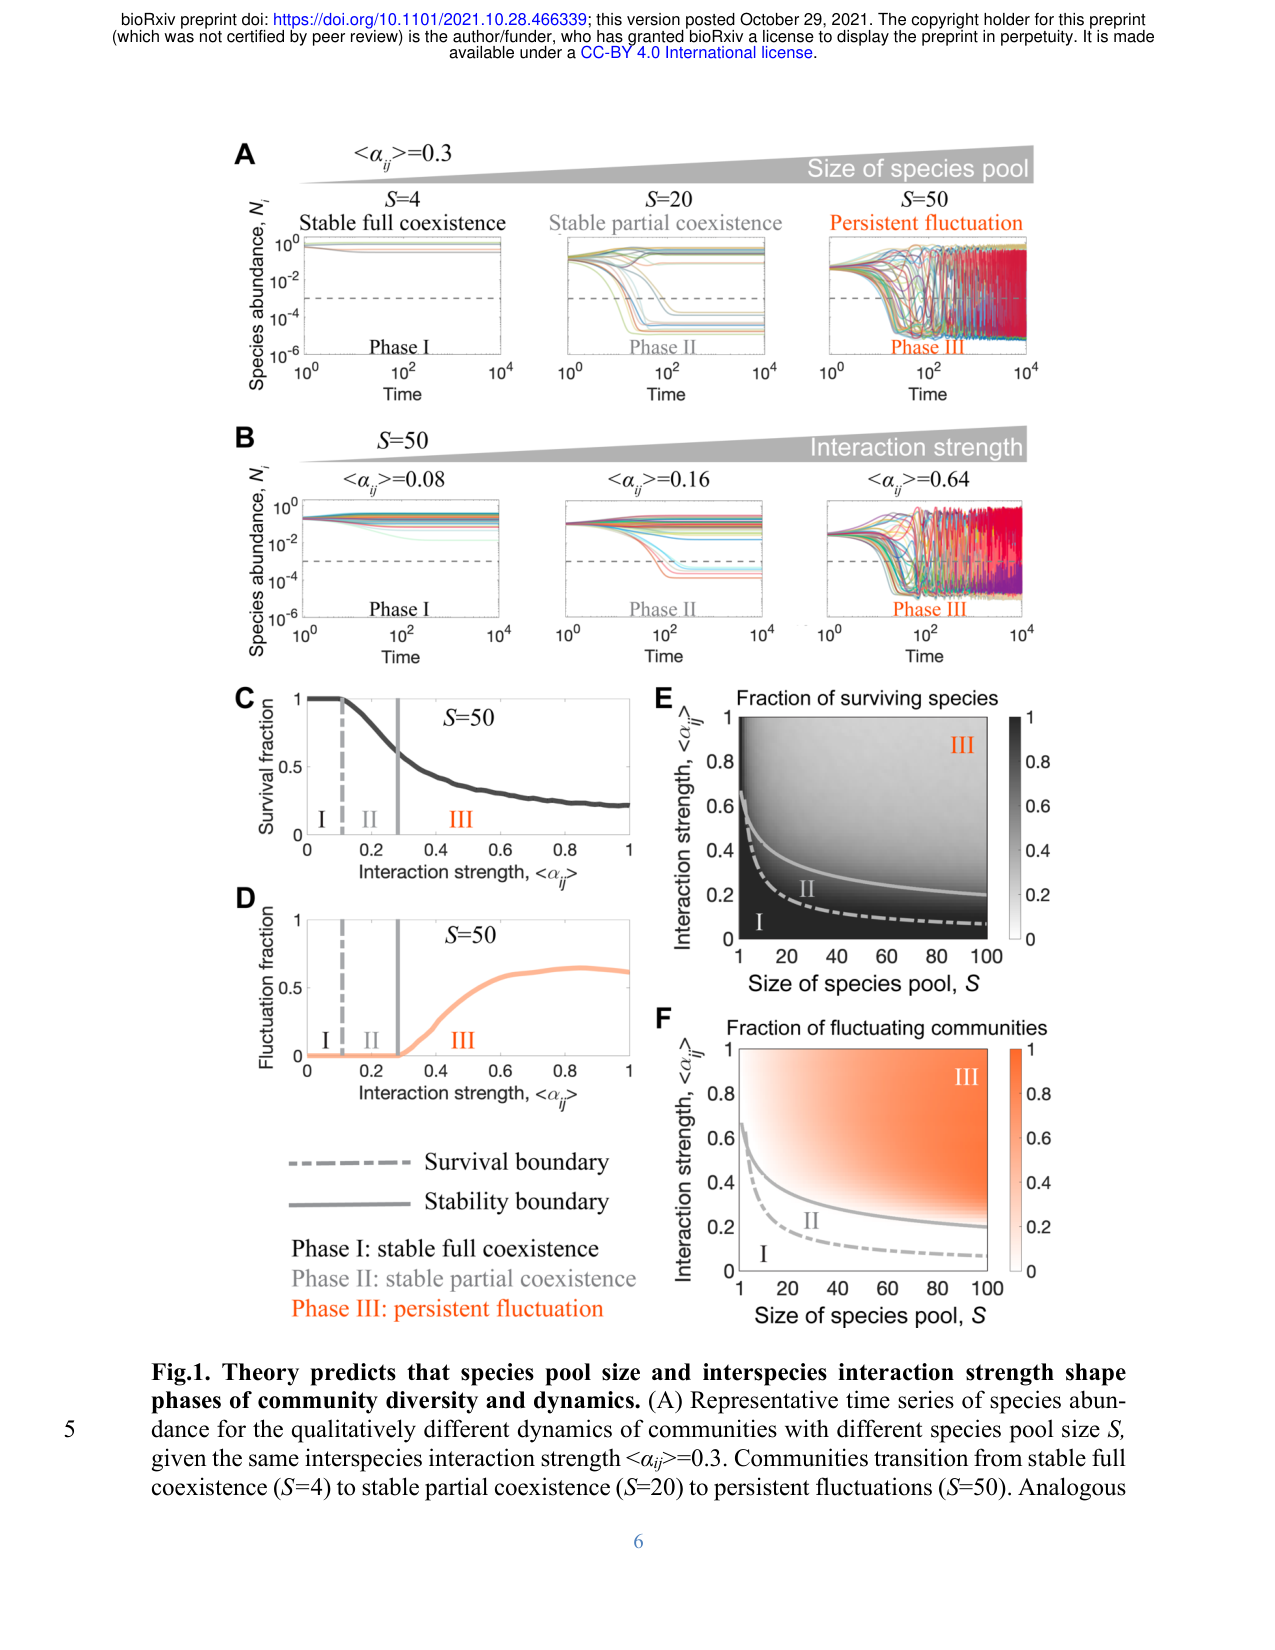
上图是理论相位图。A/B 两行时间序列给出三相的直观定义:固定 <αij>=0.3 时,S=4 全部共存且稳定(相 I),S=20 部分物种灭绝后稳定(相 II),S=50 持续振荡(相 III);固定 S、增大相互作用强度得到同样序列。E/F 的横轴是物种池大小、纵轴是相互作用强度,颜色表示存活分数(E)或涨落比例(F),灰色解析边界把参数空间切成三个相。读图要点:两轴任一增大,都沿 I→II→III 的方向走。
实验平台:48 株细菌、十天稀释循环、营养浓度当旋钮
实验端要把两个控制参数变成可调旋钮。作者从陆地环境分离了 48 株细菌,覆盖 26 个科、4 个门(Proteobacteria、Firmicutes、Bacteroidota、Actinobacteriota)。物种池大小由取子集决定:S=2–48 的 189 个合成群落,每个群落 3 个重复,每天一次生长-稀释循环共 10 天,并带物种池传播;每天循环结束时用 16S rRNA 扩增子测序估计群落组成、用光密度(OD)测总生物量。相互作用强度由培养基里葡萄糖与尿素的浓度调节——两两共培养实验显示营养越高、竞争排除的比例越高,营养浓度因此成为相互作用强度的代理旋钮。这套平台把理论模型里两个参数变成实验室里可独立调节的量。
结果:三个相全部出现,涨落群落反而更「挤」
实验在三个营养水平、S=1–48 上系统扫描。随着 S 或营养浓度增大,群落先失去物种、再失去稳定性:中等相互作用强度下,S=2 的 15 个两两共培养存活 83%±3%,S=6 的 8 个六菌组合降到 36%±7%,而 S≤6 的群落没有一个出现持续涨落;到了 24 菌组合,半数表现出涨落,存活分数从 36%±7% 缓降到 24%±2%。S=12 高营养条件下,8 个群落里 4 个稳定、4 个涨落,重复之间动力学高度可复现。把存活分数和涨落比例画成二维相位图(下图),灰色边界线把实验群落切成三个相,顺序与理论一致。
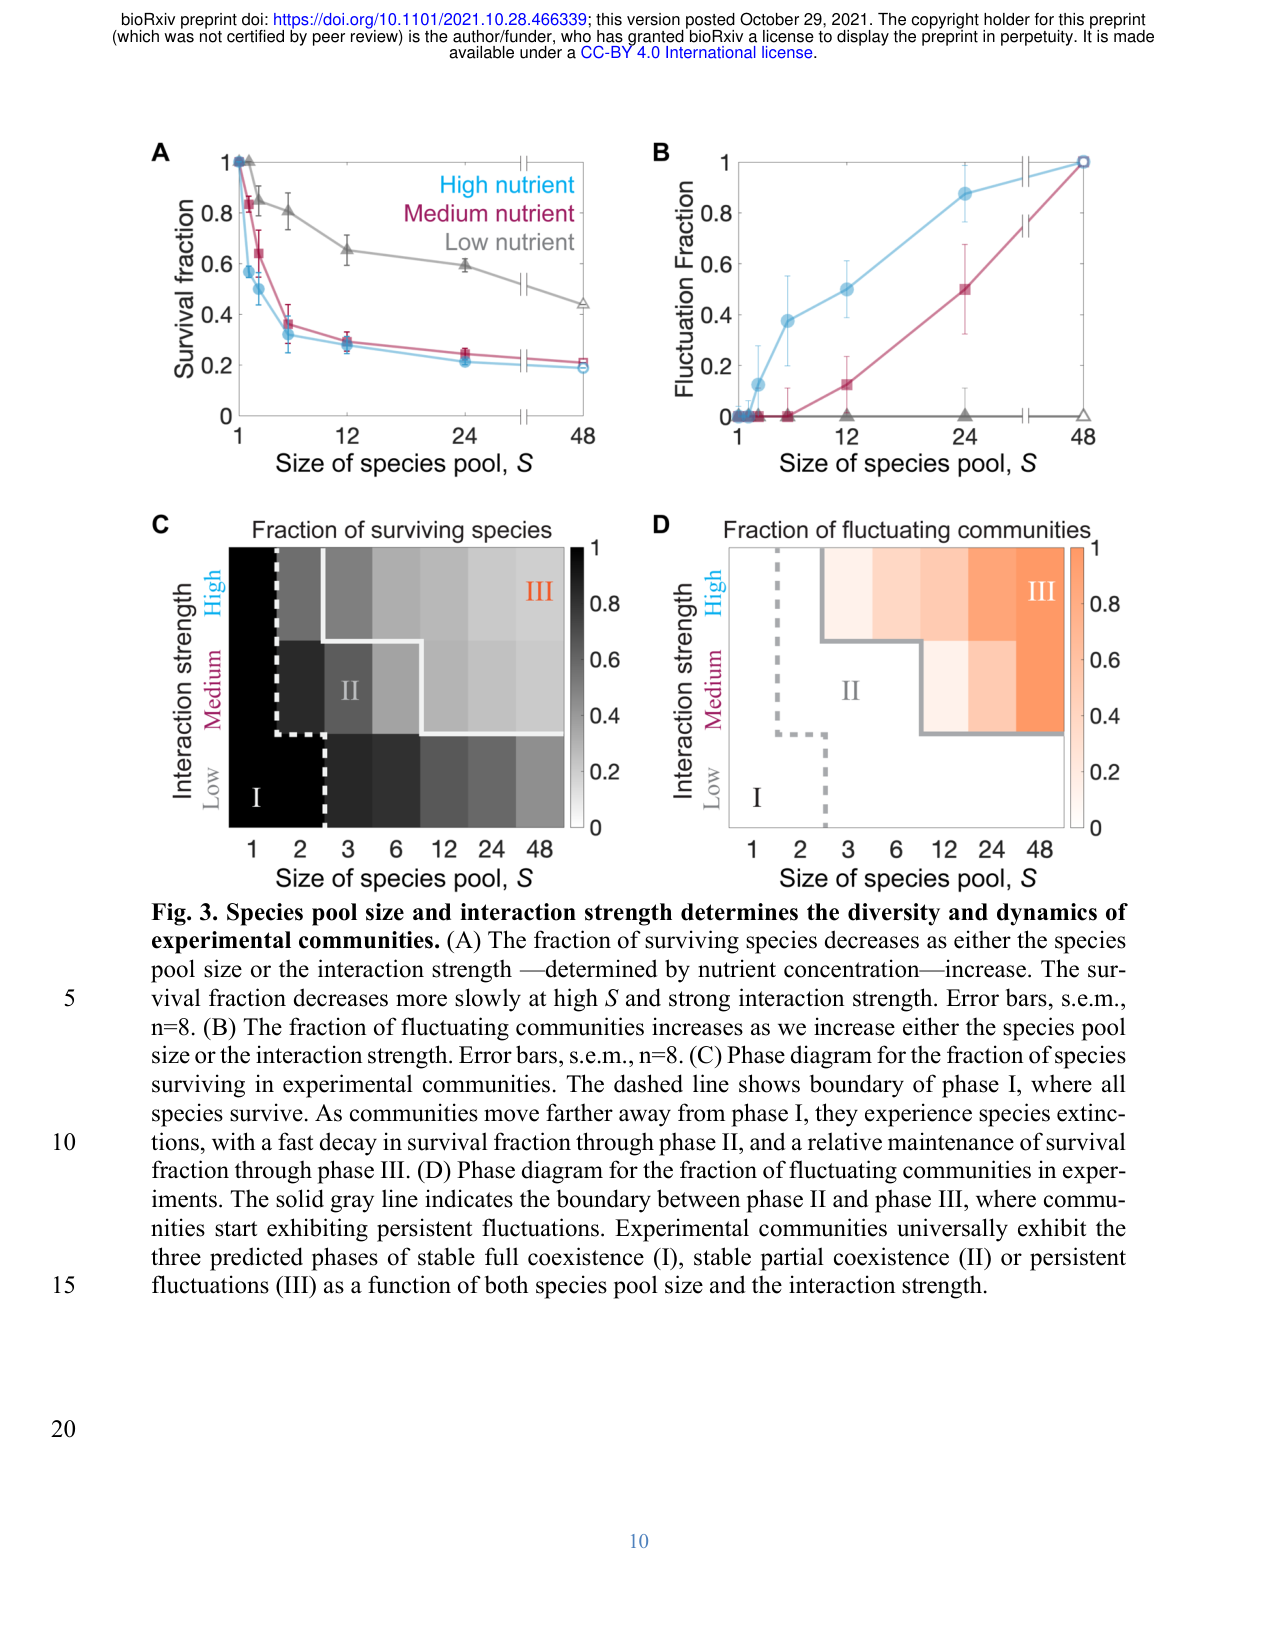
图 3 的读法:A/B 的横轴是物种池大小 S、纵轴分别是存活分数与涨落比例,蓝/粉/灰三组点对应高/中/低营养,误差棒为 s.e.m.、n=8;C/D 是同一批数据的二维相位图。关键对比在同一个 S 处、不同营养水平之间:营养越高存活越低、涨落越多。
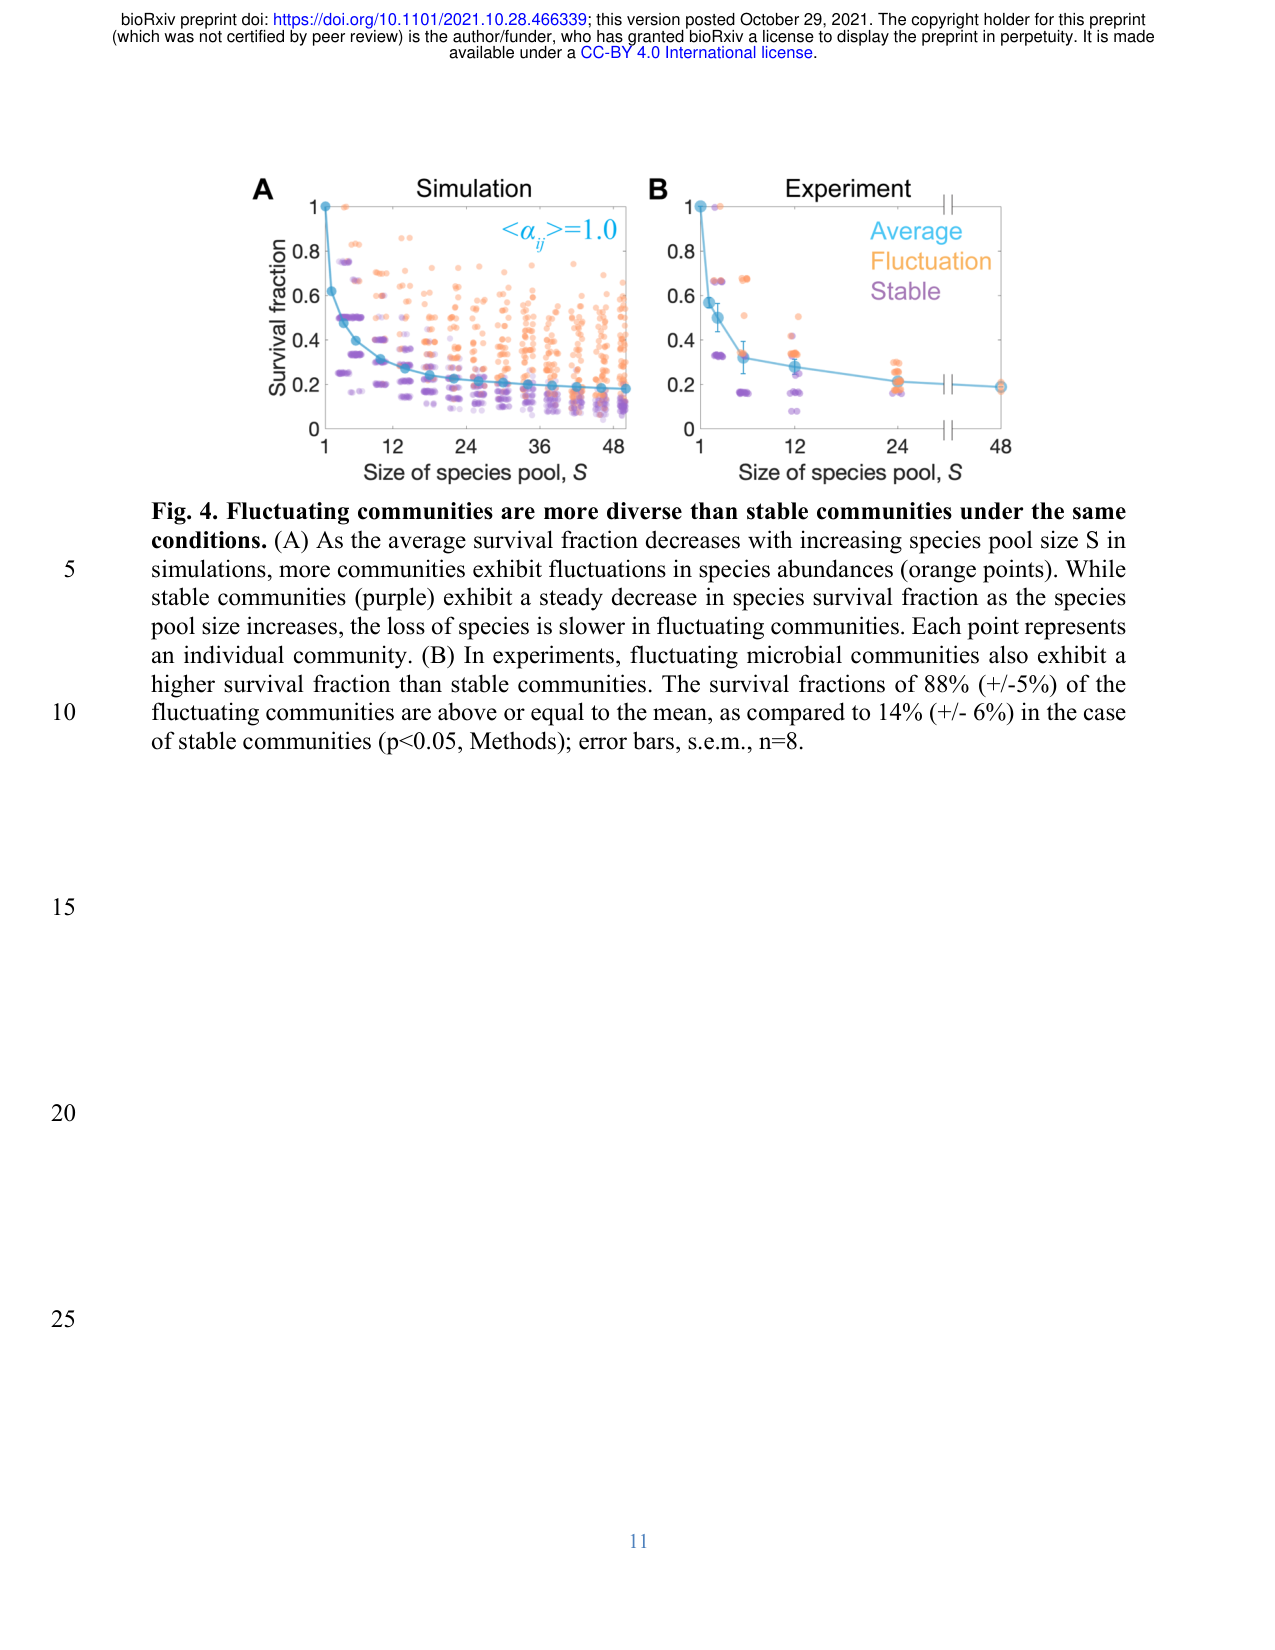
第三块结果把多样性拉进来。同一条件下,涨落群落比稳定群落保留更多物种:12 菌群落里涨落群落平均存活 5±1 种,稳定群落只有 2±1 种;88%±5% 的涨落群落存活分数达到或超过均值,稳定群落只有 14%±6%(p<0.05)。两个各自稳定的群落把物种池合并成复合群落,部分复合群落会涌现涨落;数值上停止传播或钉住最丰物种,涨落与高多样性一起消失。这些证据放在一起支持「高多样性与持续涨落互相需要并允许对方」。
多样性-稳定性关系:两个经典方向同时成立
论文把这套结果放进生态学争论最久的多样性-稳定性关系里。方向一来自 May 1972:复杂度导致不稳定,多样性上升会推高涨落;方向二来自 Chesson 1994:时间上的涨落能维持多样性,让更多物种有机会活下来。本文的实验显示两个方向同时在起作用:涨落群落里物种存活更多,而存活更多又支撑涨落持续。沿相图的两个正交方向看,结论可以互相矛盾——固定相互作用强度增大 S,涨落与多样性同步上升;固定 S 增大相互作用强度,多样性下降、涨落上升。论文指出这种方向分歧可能解释了野外多样性-稳定性研究里看似对立的观测结果。
对生成模型训练相图的类比素材
这篇的方法论对生成模型研究有价值的地方在「粗粒化相图」本身。生态学把完整相互作用矩阵换成两个统计量(均值与方差)画相图,对应到生成模型训练,可以把完整 Hessian 换成谱密度、有效秩、梯度噪声尺度这类粗粒化统计量。控制旋钮的对应关系:物种池大小 S 对应模型容量或训练数据规模,相互作用强度 <αij> 对应训练动力学强度(学习率、批量、梯度噪声水平)。涌现相也有对应:稳定收敛到好解对应相 I 的稳定全共存;部分模式坍缩、只剩少数模式存活对应相 II 的部分共存;loss 持续振荡、训练反复发散对应相 III 的持续涨落。生态学的「灭绝先于失稳」对应训练里「部分模式先坍缩、之后才整体发散」——这两件事件也常常一先一后出现。生态学里涨落维持多样性对应训练里噪声/混沌能维持模式覆盖(类似于退火或噪声正则化的探索效应)。把训练行为画成「容量-动力学强度」二维相图、用统计量预测相界,是一个可以直接借鉴的研究纲领。
局限
论文自承的局限首先在系统本身:合成微宇宙只有 10 天、单一培养基、以竞争性相互作用为主,三个相能否在自然群落、其它时间尺度和生物类群里出现,需要后续验证;实验只把相互作用沿「竞争增强」方向调节,捕食、互利、交叉喂养等机制没有覆盖,普遍性主要靠模拟的鲁棒性检验支撑。观测上,稳定/涨落判定基于第 7–10 天,慢时间尺度的涨落或缓慢灭绝可能被误判。我们补充两条:实验网格较粗(3 档营养、S 取离散值),解析边界与实验边界的定量偏差没有置信区间;「涨落维持多样性」的因果闭环在实验端主要是相关与涌现证据,钉住最丰物种、停止传播等干预只在数值模拟里完成。最后,论文指出沿不同方向增大参数可以翻转多样性-稳定性的相关方向,说明单截面观测难以下普遍结论——相图框架给出了位置,具体野外群落落在哪里仍需要测量驱动参数。
用 48 株细菌搭成的合成微宇宙,第一次在真实实验里直接检验近年复杂系统理论:只要知道物种池大小 S 和平均相互作用强度 <αij> 这两个粗粒化参数,就能预测群落会落在哪个动力学相——稳定全共存、稳定部分共存、还是持续涨落。189 个合成群落、S=2–48、3 个营养水平、每个群落 3 个重复,实验与 gLV 模型模拟都按理论预测的相序 I→II→III 排列;同一条件下涨落群落反而比稳定群落留下更多存活物种,说明高多样性与涨落互相维持。这篇是「用粗粒化统计量画复杂系统相图」的代表作,为生成模型训练相图提供了现成的类比框架。
阅读提示
精读深度:泛读
清单提示:原文提示:相图方法在真实复杂系统上的示范;为「生成模型训练相图」提供类比素材。
问题
要解决什么:野外生态群落多样性高、动力学五花八门,而生态学长期缺少一个统一框架解释『什么决定了群落里有多少物种活下来、种群丰度如何随时间变化』。要预测复杂多物种群落的宏观行为,通常需要知道物种间相互作用的完整网络,可真实生态网络里这些参数几乎无法逐对估计。本文要回答的问题很直接:能不能只用简单的聚集参数——物种池大小 S 和相互作用强度的分布统计量——预测群落长期的多样性与动力学相?
为什么 prior work 不够:Robert May 在 1972 年用随机矩阵理论给出过著名预言:物种越多、相互作用越强的群落,平衡点越容易不稳定。但这条线停留在『大而强的系统通常不稳定』,回答不了大群落怎么形成、也不覆盖失去稳定后的动力学形态;同时期的工作还发现物种会在群落丧失稳定之前先灭绝。理论上(Bunin 2017 的随机相互作用 gLV 平均场、Roy 等 2020 的相变解析证明)已预测出稳定全共存、稳定部分共存、持续涨落三个相继出现的相,但驱动参数在野外难以测量,一直缺少一个能系统调节物种池大小和相互作用强度的实验平台来做直接检验。Gore 组此前的工作(Ratzke & Gore 2020)证明相互作用强度单轴能决定多样性与稳定性,可两轴联动的二维相图、以及涨落相与多样性的双向关系,都还停在理论和模拟层面。
输入 / 输出
输入
| 名称 | 类型 | 说明 |
|---|---|---|
| 物种池大小 S | 整数(模拟 S=2–100,实验 S=2–48,另含 S=1 单菌对照) | 从 48 株细菌文库中取不同大小的子集构成物种池;模拟中随机抽样相互作用矩阵 |
| 平均相互作用强度 <αij> | 实数(模拟 U[0, 2<αij>] 均匀抽样;实验用培养基营养浓度代理) | αij 表示物种 j 抑制物种 i 生长的强度,自调节 αii=1;营养浓度越高竞争相互作用越强 |
| 传播速率 D(模拟)/ 稀释-传播循环(实验) | 标量 / 实验操作 | gLV 模型加 dispersal 项 D;实验每天一次生长-稀释循环,从物种池向群落传播 |
输出
| 名称 | 类型 | 说明 |
|---|---|---|
| 动力学相态分类(I/II/III) | 离散标签 | I=稳定全共存(所有物种存活且丰度稳定);II=稳定部分共存(部分物种灭绝、幸存者稳定);III=持续涨落(物种丰度长期振荡) |
| 物种存活分数 | 0–1 实数 | 长期存活的物种数占物种池比例;实验里由 16S rRNA 扩增子测序在每天循环结束时估计 |
| 涨落群落比例 | 0–1 实数 | 同一条件下表现出持续丰度涨落的群落比例;以第 7–10 天的 biomass/组成时间序列判定 |
数据集
| 数据 | 规模 | 备注 |
|---|---|---|
| 48 株细菌文库(陆地环境分离) | 48 个分离株,来自 26 个科、4 个门(Proteobacteria、Firmicutes、Bacteroidota、Actinobacteriota) | 用于构建不同大小的合成物种池;系统发育多样 |
| 189 个合成群落实验 | S=2–48、3 个营养水平(低/中/高)、每个群落 3 个重复、10 个日生长-稀释循环 | 实验相图的主体数据;另含 15 个两两共培养(S=2)与 8 个六菌组合用于存活率测量 |
| gLV 随机相互作用模拟 | S 与 <αij> 覆盖宽参数范围,相互作用强度 U[0, 2<αij>] 均匀抽样 | 给出解析相界(灰色虚线/实线)并预测相序 I→II→III;对相互作用强度分布与建模假设做鲁棒性检验(Fig. S3) |
架构(摘要)
主干与结构
backbone:
参数:
类型:n/a 实验生态学(无神经网络结构)
关键组件
- 理论:随机相互作用 gLV + dispersal,αij 从 U[0, 2<αij>] 抽样,αii=1
- 实验平台:48 菌株文库 → 子集物种池 → 10 天生长-稀释循环 + 传播
- 监测:每天循环结束时测总生物量(OD)与 16S rRNA 扩增子测序组成
- 控制旋钮一:物种池大小 S(2–48);控制旋钮二:营养浓度调节竞争相互作用强度
- 判据:相 I→II 用物种存活边界(灰色虚线),相 II→III 用稳定性边界(灰色实线),后者的模拟判据是群落矩阵特征值出现正实部
为什么这样设计
本文的『模型』是带传播项的广义 Lotka-Volterra(gLV)动力学 dN_i/dt = N_i(1 − Σ_j αij N_j) + D,其中 N_i 是物种 i 的丰度(以承载容量归一化),αij 是物种 j 对物种 i 的抑制强度,D 是物种池向群落的传播速率。实验端用 48 株细菌文库构造可控平台:物种池大小决定 S,营养浓度(葡萄糖+尿素)通过增强竞争决定 <αij>。选择这套设计,因为 gLV 的随机相互作用版本已有解析相界(Bunin 2017;Roy 等 2020),能把实验观测直接对到理论预测上,而不需要可学习的网络参数。
→ 详见 Architecture tab。
关键结果
| 指标 | 值 | 最强 baseline | setup |
|---|---|---|---|
| 三相序 I→II→III 在实验中被验证(核心结果) | 189 个合成群落(S=2–48、3 个营养水平、每群落 3 重复)普遍按『稳定全共存 → 稳定部分共存 → 持续涨落』排列;S=12 高营养下 8 个群落里 4 个稳定、4 个涨落 | 理论解析相界(Bunin 2017;Roy 等 2020)在模拟相位图(Fig. 1E/F)与实验相位图(Fig. 3C/D)上的灰色边界线 | gLV+D 模拟 + 48 菌株文库实验,10 天生长-稀释循环,16S 与 OD 监测,第 7–10 天判稳/涨落 |
| 物种存活分数随 S 或相互作用强度下降(先灭绝后失稳) | 中等相互作用强度下:S=2 的 15 个两两共培养存活 83%±3%;S=6 的 8 个六菌组合降到 36%±7%;S=2 与 S=6 都没有持续涨落 | 相 I→II 解析存活边界(灰虚线)与相 II→III 稳定性边界(灰实线)的相对位置——灭绝边界在参数空间里先被跨过 | 3 个营养水平、S=1–48 离散取值,s.e.m.,n=8(两两共培养 n=15) |
| 持续涨落只在更大的物种池出现 | S≤6 的群落全部稳定;24 菌组合中半数表现出持续涨落,存活分数从 6 菌时的 36%±7% 缓降到 24%±2% | S=6 稳定群落对照(涨落比例 0)与理论稳定性边界预测 | 相同营养梯度与 16S/OD 监测方案,s.e.m.,n=8 |
| 同一条件下涨落群落多样性更高 | 12 菌群落中涨落群落平均存活 5±1 种,稳定群落 2±1 种;88%±5% 的涨落群落存活分数 ≥ 均值,稳定群落只有 14%±6%(p<0.05) | 同一物种池大小与营养水平下的稳定群落(配对比较) | 12 菌群落、高营养条件,s.e.m.,n=8 |
| 涨落是群落层面的涌现属性,与高多样性互相维持 | 把两个稳定群落的物种池合并,部分复合群落出现涨落(Fig. S17);数值上停止传播或钉住最丰物种,涨落与高多样性一起消失(Fig. S1) | 两个源群落自身均稳定(涨落比例 0) | 模拟 gLV+D(Fig. S1)+ 组合群落实验(Fig. S17) |
Insights
- 复杂生态群落的宏观行为可以由两个粗粒化参数预测:物种池大小 S 与平均相互作用强度 <αij>(严格说是相互作用强度分布的均值与方差),完整相互作用网络的具体结构在长时间尺度上被『平均掉』了。
- 相变顺序『先物种灭绝、后失去稳定性』在参数空间里是普适的:无论增大 S 还是增大 <αij>,群落都先跨过存活边界(I→II)、再跨过稳定性边界(II→III),且这条顺序对相互作用强度分布、建模假设、资源显式模型都稳健。
- 高多样性与持续涨落在同一条件下同时出现并互相支持:May 的『复杂导致不稳定』与 Chesson 的『时间涨落维持多样性』两个方向同时成立,合起来解释了多样性-稳定性关系在野外观测中的方向分歧。
- 对生成模型训练相图的类比素材:生态学把完整相互作用矩阵换成统计量(均值/方差)画相图,对应 ML 里把完整 Hessian 换成谱密度、梯度噪声尺度等粗粒化统计量;控制旋钮(S、<αij>)对应模型容量/数据规模与训练动力学强度,涌现相(稳定收敛、部分模式坍缩、持续振荡/发散)对应训练稳定、部分模式丢失、loss 振荡三种宏观状态。生态学的『灭绝先于失稳』对应训练中『部分模式先坍缩、之后才整体发散』。
vs 同类工作
- 对照 May 1972 的随机矩阵稳定性理论:May 只预言『大而强相互作用→不稳定』,本文给出三相的具体顺序和两条解析边界,并用实验直接检验;May 之后五十年的随机矩阵与平均场工作(Bunin 2017;Roy 等 2020)提供了解析相界,但一直缺受控实验,本文补上了这一环。
- 对照 Ratzke & Gore 2020(Nat. Ecol. Evol.,相互作用强度决定微生物群落的多样性与稳定性):前作沿相互作用强度单轴建立关系,本文同时控制物种池大小与相互作用强度两个轴,得到二维相图并纳入持续涨落相与多样性的双向关系。
- 对照野外浮游/浮游生物长时程实验(Benincà 2008 等的混沌观测):野外能观测到涨落但无法调节驱动参数,本文把驱动参数变成实验室旋钮,是少数能系统扫描相空间的实验设置。
- 资源显式模型(Dalmedigos & Bunin 2020)与多种相互作用强度分布都能复现相序,说明结论对生物细节的依赖有限,指向普遍性。
局限
- 论文自承:合成微宇宙与自然生态系统的差距。实验只有 10 天、单一培养基、竞争性相互作用为主;三个相是否跨时空尺度、环境条件与生物类群成立,需要后续工作验证。
- 论文自承:相互作用强度只沿『竞争增强』方向调节,物种池是随机子集。捕食、互利、交叉喂养等其它相互作用机制与结构化网络在实验中没有覆盖,论文主要靠模拟的鲁棒性检验来支撑普遍性。
- 观测窗口限制:每天循环结束时取 OD/16S 快照、共 10 天,稳定/涨落判定基于第 7–10 天;慢时间尺度的涨落或缓慢灭绝可能被误判为稳定。
- 我们读出:实验参数网格很粗——营养水平只有 3 档、S 取离散值,相边界在实验中的位置只能粗测;解析边界与实验边界的定量偏差没有给出置信区间。
- 我们读出:『涨落维持多样性』的因果闭环在实验端主要是相关与涌现证据(复合群落实验),钉住最丰物种、停止传播等干预只在数值模拟中完成;实验能证明『同时出现』,对『谁先谁后』的直接证据较弱。
- 我们读出:论文指出相互作用强度变化可以把多样性-稳定性相关性翻向反方向,说明单个截面观测无法直接推广到野外;这篇给出的是相图框架,具体的野外群落落在相图哪个位置仍需要测量驱动参数。
可复现性
- code:预印本未提供公开代码仓库;模拟方法(gLV+D、随机相互作用)见正文与补充材料,平均场理论来自 Bunin 2017 与 Roy 等 2020
- weights:无(无神经网络);菌株与群落可向作者索取(Data and materials availability)
- sim_benchmark:gLV 随机相互作用模拟覆盖 S 与 <αij> 宽范围;16S 分析使用 DADA2 工作流(Callahan 等 2016)与 EMBL-EBI 工具
主干与结构
backbone:
参数:
类型:n/a 实验生态学(无神经网络结构)
关键组件
- 理论:随机相互作用 gLV + dispersal,αij 从 U[0, 2<αij>] 抽样,αii=1
- 实验平台:48 菌株文库 → 子集物种池 → 10 天生长-稀释循环 + 传播
- 监测:每天循环结束时测总生物量(OD)与 16S rRNA 扩增子测序组成
- 控制旋钮一:物种池大小 S(2–48);控制旋钮二:营养浓度调节竞争相互作用强度
- 判据:相 I→II 用物种存活边界(灰色虚线),相 II→III 用稳定性边界(灰色实线),后者的模拟判据是群落矩阵特征值出现正实部
为什么这样设计
本文的『模型』是带传播项的广义 Lotka-Volterra(gLV)动力学 dN_i/dt = N_i(1 − Σ_j αij N_j) + D,其中 N_i 是物种 i 的丰度(以承载容量归一化),αij 是物种 j 对物种 i 的抑制强度,D 是物种池向群落的传播速率。实验端用 48 株细菌文库构造可控平台:物种池大小决定 S,营养浓度(葡萄糖+尿素)通过增强竞争决定 <αij>。选择这套设计,因为 gLV 的随机相互作用版本已有解析相界(Bunin 2017;Roy 等 2020),能把实验观测直接对到理论预测上,而不需要可学习的网络参数。
理论:物种池大小与相互作用强度如何塑造群落多样性与动力学相
原文 caption:Theory predicts that species pool size and interspecies interaction strength shape phases of community diversity and dynamics. (A) Representative time series... (B)... (C) Mean fraction of species that survive... (D) fraction of communities that exhibit persistent fluctuations... (E,F) Mapping survival/fluctuation fraction onto the phase space...
全篇的骨架图。A/B 两行时间序列给出三相的直观定义:固定相互作用强度 <αij>=0.3 时,S=4 的群落全部共存且稳定(相 I),S=20 时一部分物种灭绝、幸存者稳定(相 II),S=50 时丰度持续振荡(相 III);固定 S、增大 <αij> 也得到同样序列。C/D 显示存活分数随相互作用强度下降、涨落比例上升,两条竖线标出 I→II(虚线)先于 II→III(实线)。E/F 是二维相位图:横轴物种池大小、纵轴相互作用强度,颜色代表存活分数(E)与涨落比例(F),灰色解析边界把参数空间切成三个相。读这张图就能抓住本文的方法论——用两个粗粒化参数画相图,具体网络的逐个解析在这里被统计量替代。
实验:189 个合成微生物群落的多样性-动力学相图
原文 caption:Species pool size and interaction strength determines the diversity and dynamics of experimental communities. (A) The fraction of surviving species decreases... (B) The fraction of fluctuating communities increases... (C) Phase diagram for the fraction of species surviving... (D) Phase diagram for the fraction of fluctuating communities in experiments.
理论相图在真实复杂系统上的示范。A/B 是两条关键曲线:横轴物种池大小 S,纵轴分别是存活分数与涨落比例,蓝/粉/灰三组点对应高/中/低营养(相互作用强度),误差棒为 s.e.m.、n=8。C/D 把同一批数据画成二维相位图,灰色虚线标出相 I 的边界、灰色实线标出相 II/III 边界,实验群落普遍按 I→II→III 排列。这张图支撑全文核心论断:实验微宇宙中,增大 S 或增大相互作用强度,群落先失去物种、再失去稳定性,顺序与理论解析边界一致。
同一条件下,涨落群落比稳定群落保留更多物种
原文 caption:Fluctuating communities are more diverse than stable communities under the same conditions. (A)... in simulations... (B) In experiments, fluctuating microbial communities also exhibit a higher survival fraction than stable communities.
多样性-稳定性关系的直接证据。A(模拟)与 B(实验)横轴都是物种池大小 S、纵轴都是存活分数,橙色点代表涨落群落、紫色点代表稳定群落。读法:在同一个 S 处比较两类群落,涨落群落的存活分数系统性更高;实验里 88%±5% 的涨落群落存活分数达到或超过均值,稳定群落只有 14%±6%(p<0.05,s.e.m.,n=8)。这张图说明涨落与高多样性在同一条件下同时出现、互相支持,对应 May 的『复杂→不稳定』与 Chesson 的『时间涨落维持多样性』两个方向的结合。
🎧 音频版
时长 21:27 · Edge TTS
微宇宙里的生态相图:两个旋钮,画出群落的三张面孔(对话版·泛读)
先说说这篇生态学论文,为什么值得我们做一期
小播:老播,今天我们这篇标题里全是生态学的词——《微宇宙中生态多样性与动力学的涌现相》。咱们这个系列一直讲生成模型和 AI,怎么突然插进来一篇细菌实验?
老播:因为这篇回答的问题和训练神经网络是同一类:一个由成千上万个体组成的复杂系统,能不能用少数几个粗粒化参数预测它的宏观行为?生态学这边,论文作者把理论物理里那套「相图」方法搬进真实的细菌群落,第一次在实验里直接检验了「物种池大小和相互作用强度决定群落动力学」的预测。这套「用统计量画相图」的方法论,直接可以挪到生成模型训练上——这也是我们今天特意讲它的原因。
小播:那先给个一句话结论,让我们有抓手。
老播:结论一句话:群落里有多少物种、动力学稳不稳定,主要看两个旋钮——物种池大小 S 和平均相互作用强度,把这两个参数一画,群落落在哪个相、按什么顺序切换,都能预测;实验和理论对上了,而且同一条件下,一直在波动的群落反而留下更多物种。
先把背景铺开:多样性、稳定性,和五十年前的 May
小播:这个「多样性」和「稳定性」,是生态学里什么级别的老问题?
老播:级别非常老,争论了几十年。先把两个词定义清楚:多样性,指一个群落里长期存活的物种数量;稳定性,指物种丰度会不会随时间大幅波动、群落会不会崩溃。野外观察早就发现,不同群落的动力学五花八门——有的很平静,有的周期性振荡,有的接近混沌。问题在于:什么决定了多样性?什么决定了动力学?两者怎么互相影响?这三件事一直没有统一答案。
小播:野外看到的涨落,人们一般怎么解释?
老播:多数时候归给外部环境,比如季节、降雨、养分输入。野外观察有个天然短板:外部驱动和群落内部属性混在一起,分不开。实验室实验的优势就在这里——环境可以压到最平稳,剩下的涨落只能来自群落内部的相互作用。不过此前的实验室实验都是小系统:Fussmann 2000 年用捕食者和被捕食者做出极限环振荡,成对的竞争实验、交叉喂养实验也很多,但都是两三个物种、靠某一对具体机制解释,没有人回答过「几十上百个物种的群落,会不会涌现出小系统里看不到的新宏观规律」。而且野外数据的样本量通常有限、时间序列短,想分清楚涨落到底是群落内在的还是外部环境驱动的,需要刻意设计的对照实验,这在自然系统里几乎做不到。
小播:那理论那边,五十年前就有人给答案了吗?
老播:给了一半。起点是 Robert May 在 1972 年的著名论文,他把群落物种间的相互作用当成一个随机矩阵,用随机矩阵理论算平衡点的稳定性,得到一个判据。先给预期:这个不等式要回答「什么样的群落平衡点稳不住」。判据是:相互作用的标准差 σ,乘以物种数 S 的平方根,超过 1 的时候,平衡点对扰动失稳。符号解释:σ 衡量相互作用强度散得多开,S 是物种数,左边的量近似等于随机矩阵最大特征值的实部。意思是物种越多、相互作用越强,群落越容易不稳定。这个判据后来被反复检验和修正:现实群落的相互作用网络有结构、有正负号,May 的随机矩阵是平均意义上的极限情况,但它奠定了「复杂度本身是稳定性的敌人」这个持续半个世纪的争论框架。这条线后来发展成随机相互作用模型下的广义 Lotka-Volterra 平均场理论,Bunin 在 2017 年、Roy 等人在 2020 年从理论上证明,群落会依次出现三个相:稳定全共存、稳定部分共存、持续涨落,还给了解析的相边界。这里用到的平均场方法可以这样理解:把其它所有物种对某一个物种的影响,用它们丰度的平均值来代表,把高维问题压成低维方程,随机相互作用下还能解析地把相界算出来。
小播:那中间卡在哪?为什么一直没人做实验验证?
老播:卡在参数测不到。理论要求的驱动参数是物种间的相互作用强度,野外生态网络里几乎没法逐对测量。要检验相图预测,你需要一个能独立调节物种池大小、又能独立调节相互作用强度、还能观察几十上百个群落的实验平台。这篇论文把三件事凑齐了——所以标题里那个「mapped in microcosms」的意思是「在微宇宙里把相图画出来」,微宇宙就是他们搭的合成细菌群落。
核心思路:两个旋钮、三个相、两条边界
小播:好,进入正题。他们说的「相」到底是什么?怎么定义?
老播:先给个定义:相,就是由少数参数区分的宏观状态类型。你看水,温度和压强一变,水在液态、固态、气态之间切换,宏观表现完全不同。生态群落也一样,作者沿两个控制参数扫描,群落宏观行为会变出三种类型。相一,稳定全共存,所有物种都活着、丰度稳定;相二,稳定部分共存,一部分物种灭绝了,活下来的稳定下来;相三,持续涨落,物种丰度长期振荡,停不下来。两个控制参数,第一个是物种池大小 S——定义一下,物种池就是能通过传播进入群落的物种集合,实验里由细菌文库取多少株决定;第二个是平均相互作用强度,指物种之间相互抑制的平均水平。
小播:那这两个旋钮怎么进模型?给个式子吧。
老播:模型是生态学标准工具,带传播项的广义 Lotka-Volterra 方程,简称 gLV。先给预期:这个方程要回答「给定物种池和相互作用强度,群落长期停在哪种宏观状态」。方程是 dN_i 除以 dt 等于 N_i 乘以括号 1 减所有物种对 i 的抑制项之和,再加 D。逐项解释:N_i 是物种 i 的丰度,归一到承载容量,单菌时稳定在 1;αij 是物种 j 对物种 i 的抑制强度,αii 等于 1 表示自身调节;括号里 1 减去总抑制,再乘上 N_i,表示竞争让增长速度变慢;最后加的 D 是传播速率,让灭绝的物种能重新进来。模拟里 αij 从 0 到两倍均值的均匀分布里抽,所以平均值这一个参数就同时定住了分布的位置和宽度。顺带说一个细节:成对竞争里,当 αij 大于 1 时,抑制强度压过自身增长,两株菌放在一起就会出现竞争排除,一个被挤出;所以平均相互作用强度往上涨,等于越来越多的成对关系从共存翻成排除。相图里沿着相互作用强度轴走一步,实际发生的是大量这类成对关系一起翻转。
小播:三个相在参数空间里怎么排?会不会乱跳?
老播:排得很规矩,这是全文最值钱的地方。论文给了个非常清楚的演示:模拟里把相互作用强度均值固定成 0.3,物种池大小从 4 涨到 20 再涨到 50——S 等于 4 时全部共存稳定,进相一;S 等于 20 时一部分物种灭绝、剩下的稳定下来,进相二;S 等于 50 时开始持续涨落,进相三。反过来固定物种池大小、增大相互作用强度,也走同样序列。增大任何一个旋钮,群落都沿同一个顺序走:先跨过第一条边界,从相一进到相二,一部分物种灭绝;再跨过第二条边界,从相二进到相三,开始持续涨落。这两条边界在参数空间里是分开的两条线,所以「物种先灭绝、后失去稳定性」本身成了一个可检验的预测。模拟里相二到相三的转变点,和群落矩阵特征值出现正实部完全吻合。群落矩阵,就是相互作用矩阵乘上平衡态的丰度,它的特征值实部正负决定扰动是被放大还是衰减;实部为正,意思是平衡点对扰动敏感,小扰动会被放大,平衡就维持不住。边界线来自平均场解析解,模拟的数值色块和解析线贴得很近;换成不同的相互作用强度分布、换建模假设,相序都不变,用资源显式模型也能复现。把相互作用当成随机抽样,延续了 May 1972 年的做法,好处是捕捉物种异质性,同时不假设任何特定的网络结构。
小播:为什么这算「粗粒化」?听起来没用到相互作用网络的细节。
老播:对,这就是方法论的精华。按理说,要预测一个群落的长期行为,你得知道所有物种两两之间的相互作用,也就是完整矩阵;这篇论文证明,长期宏观行为只依赖两个聚集统计量——物种池大小,和相互作用强度的均值与方差,网络的具体结构被时间平均掉了。你可以对照生成模型训练来理解这个框架:把物种池大小 S 对应模型容量或训练数据规模,把相互作用强度对应训练动力学强度,比如学习率、批量大小、梯度噪声水平;三个相就有对应物——稳定收敛到好解对应相一的稳定全共存,部分模式坍缩、只剩少数模式存活对应相二的部分共存,loss 持续振荡、训练反复不稳定对应相三的持续涨落。生态学有两条边界,存活边界和稳定性边界;训练里对应「模式坍缩边界」和「训练发散边界」。生态学里灭绝先于失稳,对应训练里常见的「部分模式先坍缩、之后才整体发散」,这两条边界离得越近,调参越要小心。生态学里涨落维持多样性,对应训练里噪声或混沌能维持模式覆盖,类似退火和噪声正则化的探索效果。这就是这篇给生成模型研究的类比素材:用粗粒化统计量画训练相图、预测相界,而不用盯着完整的 Hessian 矩阵。这套框架还有个细节值得注意:两个旋钮是联动的——同一物种池大小下抬高相互作用强度,群落会平移进相三;训练里也一样,容量和数据规模决定你能走到哪一档,学习率和噪声决定稳不稳,两个轴要放在一起看。
实验怎么搭、看到什么:48 株细菌,十天循环
小播:理论说得漂亮,实验端真能控制这两个旋钮吗?
老播:能,这是这篇最硬的部分。作者从陆地环境分离了 48 株细菌,覆盖 26 个科、4 个门。物种池大小由取子集决定,做成了 189 个合成群落:物种池大小从 2 到 48,每种大小取 8 种不同的物种组合,每个群落 3 个重复,每天一次生长加稀释的循环,一共 10 天,每次循环还带物种池传播;每天结束时用 16S 测序看群落组成、用光密度测总生物量。光密度就是培养液的浑浊度,菌越多越浑,是个粗略但便宜的总量指标。16S 测序定义一下:16S 核糖体 RNA 基因是所有细菌都有的保守基因,但序列上有物种差异,扩增测序就能读出每个物种的比例。相互作用强度这个旋钮,靠培养基里的葡萄糖和尿素浓度来拧——先在两两共培养实验里验证过:30 个两两配对、每个营养水平上分别统计,营养浓度越高,竞争排除的比例越高,也就是一个物种把另一个挤出群落的比例越高。所以三个营养水平就是三档相互作用强度。
小播:那结果呢?三个相真的都出现了?
老播:出现了,顺序和理论一致。先看存活这条线,也就是「先灭绝」那一步:中等相互作用强度下,S 等于 2 的 15 个两两共培养,平均 83% 的物种存活,误差正负 3 个百分点;S 等于 6 的 8 个六菌组合,降到 36%,误差正负 7 个百分点。这时群落还没有一个出现持续涨落——灭绝先发生,稳定性还没丢。涨落要等更大的物种池:24 菌组合里半数出现涨落,存活分数只缓降到 24%,误差正负 2 个百分点。单菌和两菌的群落全部稳定。S 等于 12、高营养那一格最能说明问题:8 个群落里 4 个稳定、4 个涨落,重复之间动力学高度可复现;涨落的那 4 个,物种丰度一直变到第 10 天没收敛,稳定的 4 个早早各自安定下来。而且总生物量的波动和物种丰度的波动高度相关,说明用简单的光密度也能抓住群落级的不稳定。把存活分数和涨落比例画成二维相图,横轴物种池大小、纵轴营养水平,灰色边界线把实验群落切成三个相,跟理论相位图对得上。时间序列本身也讲得通:低营养、小物种池的群落,总生物量一路平稳;营养抬到中档、高档,或者物种池加到 48 株,越来越多的群落开始出现波动。48 株那一档,低营养是唯一让群落稳定的条件,高营养下重复之间的组成差异明显变大。把群落分成稳定组和涨落组,用总生物量、用 16S 组成、用重复间分歧度三种方法判,结论都一样。
小播:那「涨落群落反而更挤」是怎么回事?不应该是波动越大越留不住物种吗?
老播:结果正好相反,这是第二个关键结论。在同一个条件下,涨落的群落比稳定的群落保留更多物种:12 菌群落里,涨落群落平均存活 5 个物种,正负 1,稳定群落平均只有 2 个,正负 1;统计上,88% 正负 5 个百分点的涨落群落存活分数达到或超过均值,稳定群落里这个比例只有 14% 正负 6 个百分点,p 值小于 0.05,每组 8 个群落、误差用标准误。更说明问题的是涌现性检验:把两个各自都稳定的群落的物种池合并成一个复合群落,一部分复合群落出现了涨落——两个稳定系统合起来反而波动,说明涨落是群落层面涌现出来的属性,依赖多样性才出现。这个组合实验在正文里没有给具体数字,但方向很干净:涌现属性要靠组合来检验,单个群落的纵向观察给不出这个证据。反过来,数值上停止传播、或者钉住最丰物种的丰度,涨落和高多样性会一起消失。所以结论是:高多样性和持续涨落互相需要、互相维持,May 说的「复杂导致不稳定」和 Chesson 说的「时间涨落维持多样性」两个方向同时成立。
把它放进谱系:May 的预言、Bunin 的理论、Gore 组的平台
小播:那这篇在整条线上是什么位置?
老播:它站在两个肩膀上:May 1972 预言了大而强的系统不稳定,但没给相序,也没被实验检验;Bunin 2017 和 Roy 等 2020 从理论上证明了三个相继起和解析相界,但缺实验;这篇把两者接起来,用受控微宇宙完成第一次直接检验。同一实验室的前作,Ratzke 和 Gore 2020 年已经证明相互作用强度单轴能决定微生物群落的多样性与稳定性,这篇往前推了一步,同时控制物种池大小和相互作用强度两个轴,画出二维相图,把涨落相和多样性的双向关系也装了进去。再往远处对照,Goldford 等 2018 年在 Science 上发现微生物群落的装配结局可以由宏观特征预测,那篇偏「最后剩下谁」,本篇管「动态怎么演」;野外浮游生物实验观察过混沌和涨落,但驱动参数调不了,只能看,这篇把参数变成实验室旋钮,扫描的空间尺度完全不同。还有一层理论血统值得点出来:Bunin 2017 那套平均场用的是统计力学处理无序系统的方法,跟生成模型理论里用随机矩阵分析损失景观是同一门手艺,这也是两边的工具能互相搬的原因。
说说局限:微宇宙能回答什么、回答不了什么
小播:那这套结论的边界在哪?我们替听众把把关。
老播:几条,一条条来。第一,系统本身很简化:实验只有 10 天、一种培养基、以竞争性相互作用为主,捕食、互利、交叉喂养这些机制没覆盖,论文自己承认,三个相能不能推广到自然群落、更长的时间尺度和别的生物类群,要后续工作验证。第二,观测窗口有限:每天只在循环结束时取一次快照,稳定还是涨落按第 7 到第 10 天判定,慢时间尺度的涨落或缓慢灭绝有可能被误判成稳定;16S 扩增子测序的分辨率到序列变体这一级,接近菌株,但一天一次的采样只能看到日尺度变化,更快的内生涨落看不到。第三,实验网格比较粗:营养只有三档、物种池大小取离散值,相边界的位置只能粗测,解析边界和实验边界的定量偏差没有给出置信区间。第四,因果证据的强度要分清楚:「涨落维持多样性」这条因果链,实验端主要是相关和涌现证据,钉住最丰物种、停止传播这些干预只发生在数值模拟里,实验直接证明的是「同时出现」。第五,论文自己也指出,沿相图不同方向增大参数,多样性-稳定性的相关方向会翻转,所以单个野外观测截面很难下普遍结论,相图框架给出的是位置,具体群落落在哪还得去测驱动参数。另外还有一条我们读出来的:论文说预测只需要统计量、不需要知道网络细节,这个结论在「随机相互作用」的设定下成立,实验里物种池也是随机取子集;真实群落有强烈的网络结构,比如食物网的分层、互惠网络,这类结构化网络能不能用同样的统计量预测,论文没有直接回答。
收个尾:记住三件事,再想想生成模型那边
小播:好,最后请老播把本期最该记住的三件事收一收。
老播:第一件,复杂生态群落的宏观行为可以用两个粗粒化参数预测——物种池大小和平均相互作用强度,完整相互作用网络的具体结构在这套框架里可以不用知道。第二件,相变顺序是固定的:群落先失去物种、再失去稳定性,从稳定全共存,到稳定部分共存,再到持续涨落,这个顺序在模拟和实验里都成立,对建模假设的变化还特别稳。第三件,同一条件下涨落群落反而更挤,高多样性和持续涨落互相维持——May 和 Chesson 的两个方向同时起作用。
小播:那这篇对后续工作意味着什么?
老播:对生成模型研究,它提供一个可以直接借鉴的研究纲领:把训练过程当成复杂系统,用容量、数据规模、学习率、梯度噪声这些粗粒化参数画训练相图,用谱密度、有效秩、梯度噪声尺度这些统计量去预测相界,观察稳定收敛、部分模式坍缩、持续振荡这三类宏观状态怎么切换。生态学这篇证明,这条路在真实复杂系统上走得通——先把控制参数找对,把宏观状态分好类,相图自然会把规律显出来。下次你训练一个大模型,看到 loss 开始振荡、生成样本的模式慢慢变少,可以问自己一句:我现在站在训练相图的哪个位置,离模式坍缩边界和发散边界还有多远。说到底,这几件事串成一句话:宏观规律来自少数参数,先把宏观状态分好类、再找边界,复杂系统也能被预测。