Attractor and integrator networks in the brain(泛读)
一句话定位:系统神经科学里关于吸引子网络的一篇权威综述。它把「大脑如何维持记忆、如何做积分、如何做决策」统一进同一个动力学框架,给出五条可检验判据,并用眼动积分器、头方向回路、网格细胞等已通过群体记录验证的实例,论证大脑确实构造并使用连续吸引子网络。对 ML 读者,它的核心价值是建立一张词汇表:记忆 = 稳定不动点,积分 = flow map——后一条与生成模型里「学习速度场、积分 ODE 得到输运轨迹」的图景严格对应,只是这里的「速度场」由递归神经回路实现。
1. 要解决什么问题
单个神经元只能在自己的膜电容时间尺度(约 10–100 毫秒)上积分输入,但工作记忆、证据累积、路径积分都需要在 1–100 秒的时间尺度上维持活动。吸引子理论给出一个候选答案:递归回路通过集体正反馈把某些活动状态稳定成「吸引子」,稳定态就是记忆的载体;给回路输入速度信号,让状态沿吸引子流形移动,就实现了积分。这套理论从 Hopfield(1982)、Amari(1977)、Wilson & Cowan(1973)起已经存在四十多年,问题在于它长期缺少实验检验:过去只能一次记录一两个神经元,而吸引子模型预测的是群体状态空间的结构——状态局域在低维集合、扰动后流回、跨条件保持不变。传统「调谐曲线」分析根本测不出这些性质。本篇综述解决的问题正是:把模型的预测整理成可检验的判据,汇总近年数千神经元同时记录与状态空间分析(PCA、Isomap、t-SNE、拓扑数据分析)的证据,逐回路给出「已确证 / 存疑 / 反例」的分级结论。
2. 词汇表:记忆是稳定不动点,积分是 flow map
先把两个核心词汇建立起来。
记忆 = 稳定不动点。 动力系统里,吸引子是状态空间中「附近所有状态最终都会流进去」的最小集合。最简单的一类是稳定不动点:单个点,邻近状态都被它吸过去。Hopfield 网络用 Hebbian 学习把一组输入模式写进对称权重,每个模式变成一个不动点;给出一个残缺或带噪的版本,动力学会把状态拉回最近的不动点,这就是内容寻址记忆。离散吸引子对应「记住几个离散选项」。连续吸引子则让不动点连成一条流形——线、环、环面——每个位置都是一个中性稳定的状态,于是可以记忆一个连续变量(例如朝向角度 0–360° 对应环上的一圈位置)。权重里有连续对称性(平移不变、旋转不变)是产生连续吸引子的关键。
积分 = flow map。 非线性连续吸引子本身只能维持状态,要变成积分器还得有一个「移动状态的机制」:把外部变量的速度信号接进网络,速度输入引起内部状态沿流形位移,那么当前位置就等于过去速度对时间的积分。生成模型领域的读者会发现这就是 flow map 的定义:学习一个向量场 v_t,从噪声 x_0 出发积分 ODE,得到输运终点;脑回路做的事情同构,只是「向量场」由递归权重实现,「初始状态」由外部输入锚定,「积分」由活动斑块沿流形的位移完成。综述里把它称作 copy-and-offset 机制:造两个权重略微非对称的回路拷贝,活动斑块被偏置着向某个方向流动;两个方向相反的拷贝耦合起来形成推挽平衡,速度输入差分地作用到拷贝上打破平衡,斑块就沿对应方向移动。位移 = ∫ 速度 dt,这个式子就是这个机制的全部内容。同样的原理统一了眼动积分器、头方向回路和网格细胞这些看似不同的系统。
3. 构造机制:正反馈、模式形成与对称性
吸引子形成的通用原则是强递归正反馈:正反馈对抗活动衰减,把某些状态稳定下来,而哪些状态被稳定由权重决定。对称权重矩阵对应的网络有 Lyapunov 能量面,稳定态是能量极小值,状态像球滚下山坡一样流向吸引子。离散吸引子(Hopfield、winner-take-all)的构造大家都熟悉,这里重点讲连续吸引子怎么造出来。综述给出三个充分条件:一是神经元有饱和非线性、或者递归由抑制主导并配均匀兴奋驱动,保证活动有界;二是递归权重足够强、且是「局域兴奋 + 更广抑制」的竞争形式,触发 Turing 模式形成,产生局域活动斑块;三是权重具有连续对称性,保证斑块可以出现在任意位置,形成连续一族等价状态。这三条都满足,就有连续吸引子;对称被破坏,连续吸引子就碎成离散的一堆状态——这也是它脆弱的原因。还有一个特例:线性(或近线性)神经元的网络不需要模式形成,只要把反馈强度精确调到等于衰减,就能支撑一条线吸引子;代价是必须精细调参,差一点都不行。
4. 五条判据:怎么证明一个回路真的在用吸引子
综述给实验者提供了五条判据。前两条是必要但不充分的:1) 群体状态局域在一个低维集合上;2) 扰动后状态快速流回该集合。低维输入或前馈投影也能造成这两个假象,所以关键在第三条:3) 吸引子状态集在时间、条件、去除调谐输入、甚至清醒与睡眠之间保持不变——只有递归连接内部稳定化的状态才能做到这一点。积分器回路还要满足 4) 等距性:流形上的长度与外部变量的位移成正比(头方向环上转 90° 对应环上转 90°)。最后还有 5) 解剖结构对应:低维连接与对称性可以在结构上找到。方法上,1–2 维流形可以直接用 PCA 等线性投影观察,3 维以内或拓扑非平凡(环、环面)的结构要用非线性嵌入(Isomap、t-SNE、LFADS)和拓扑数据分析。整套方法论就是「把高维群体活动压到低维,检查是否有一条不变的低维结构」。
5. 证据:四个已经过审的回路
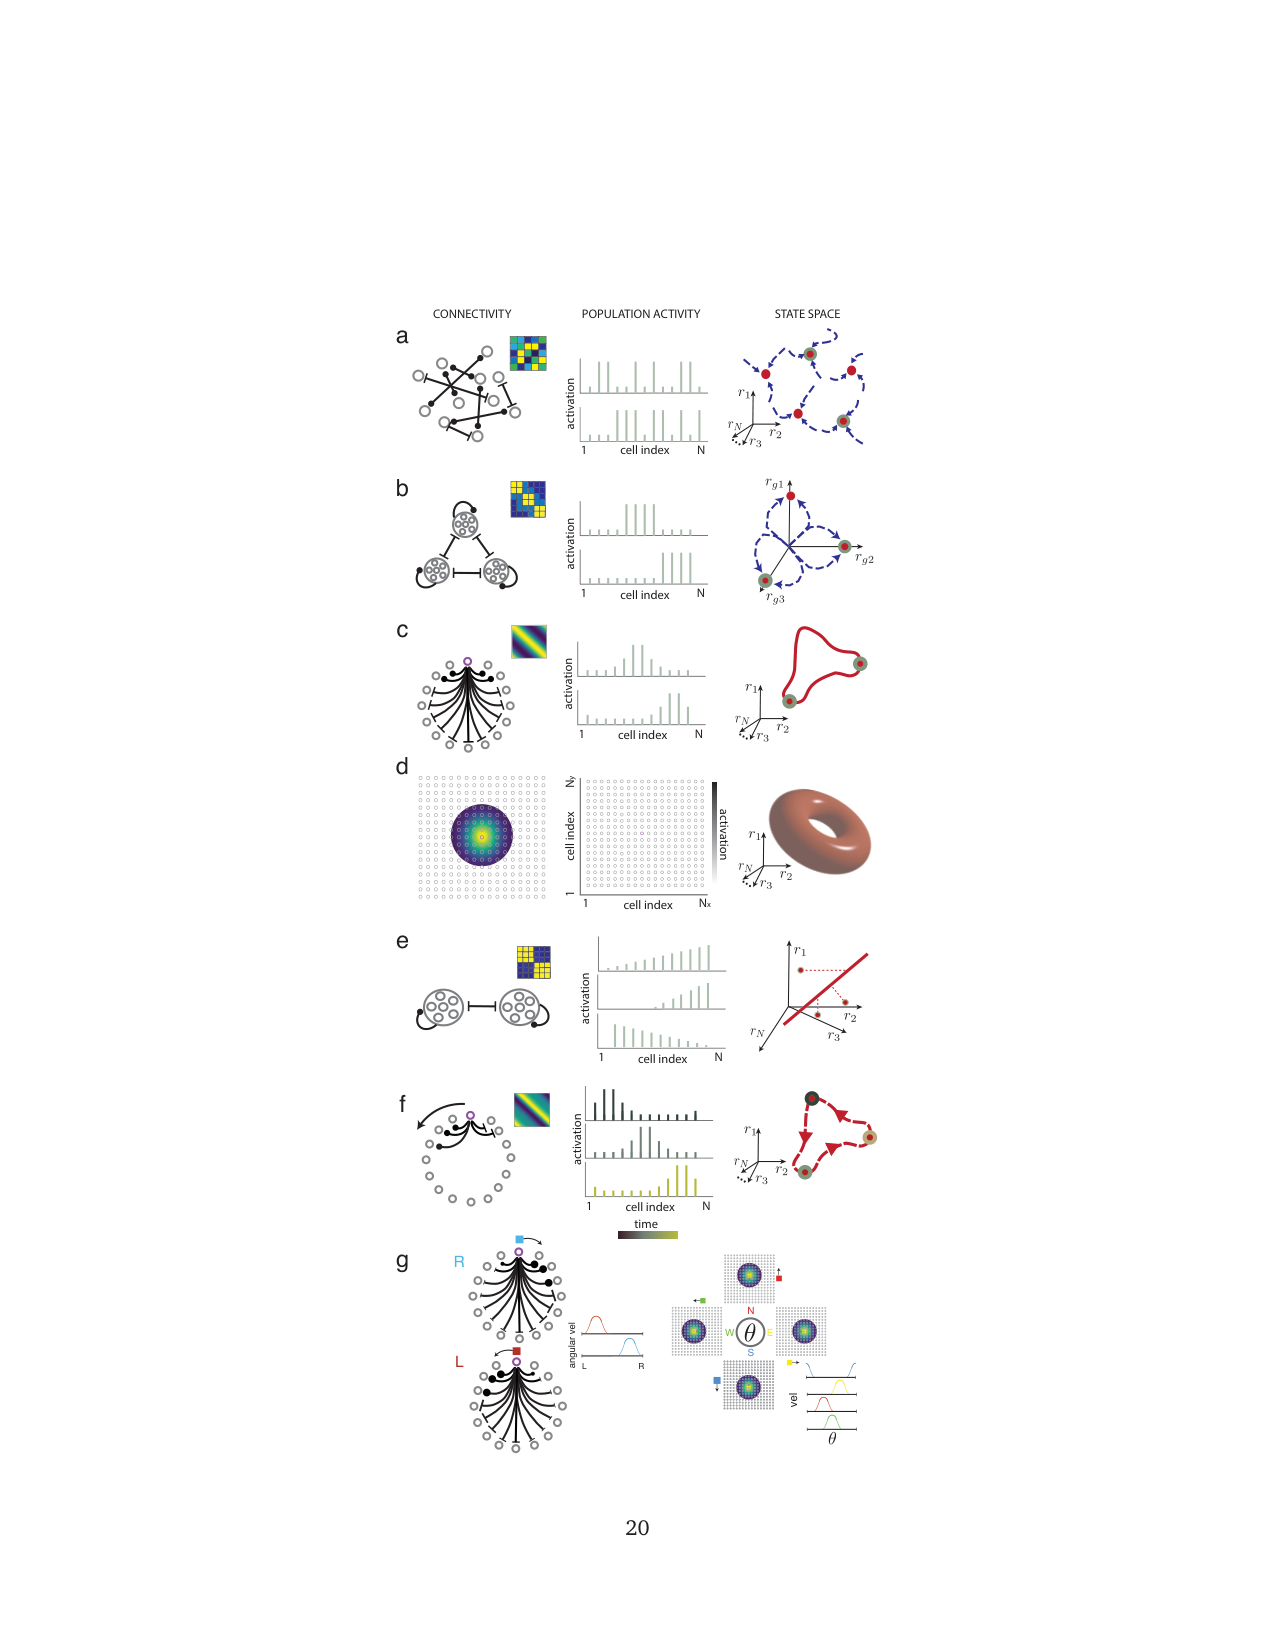
Figure 1 是全文词汇表:三列(连接结构、群体活动、状态空间)把离散点吸引子(a)、环吸引子(c)、环面吸引子(d)、线吸引子(e)、极限环(f)、copy-and-offset 积分器(g)一次画清。
眼动积分器(线吸引子)。 这个回路在斑马鱼、金鱼到灵长类都保守存在。它把约 100 毫秒的扫视(saccade)脉冲命令积成稳定的「台阶」肌肉张力命令:一次扫视后眼睛停在新的角度并保持,即使关灯、没有视觉反馈也能保持数秒。向单个眼动神经元注入瞬态电流只产生瞬态发放变化,证明积分是网络层面的事;用突触阻断剂降低网络反馈,积分就变成泄漏型;反过来,用虚拟视觉环境制造人为的视网膜滑移,训练能把积分器从失稳调回稳定——说明回路支持误差驱动的微调。这是「脉冲进、台阶出」的积分器标准范式。
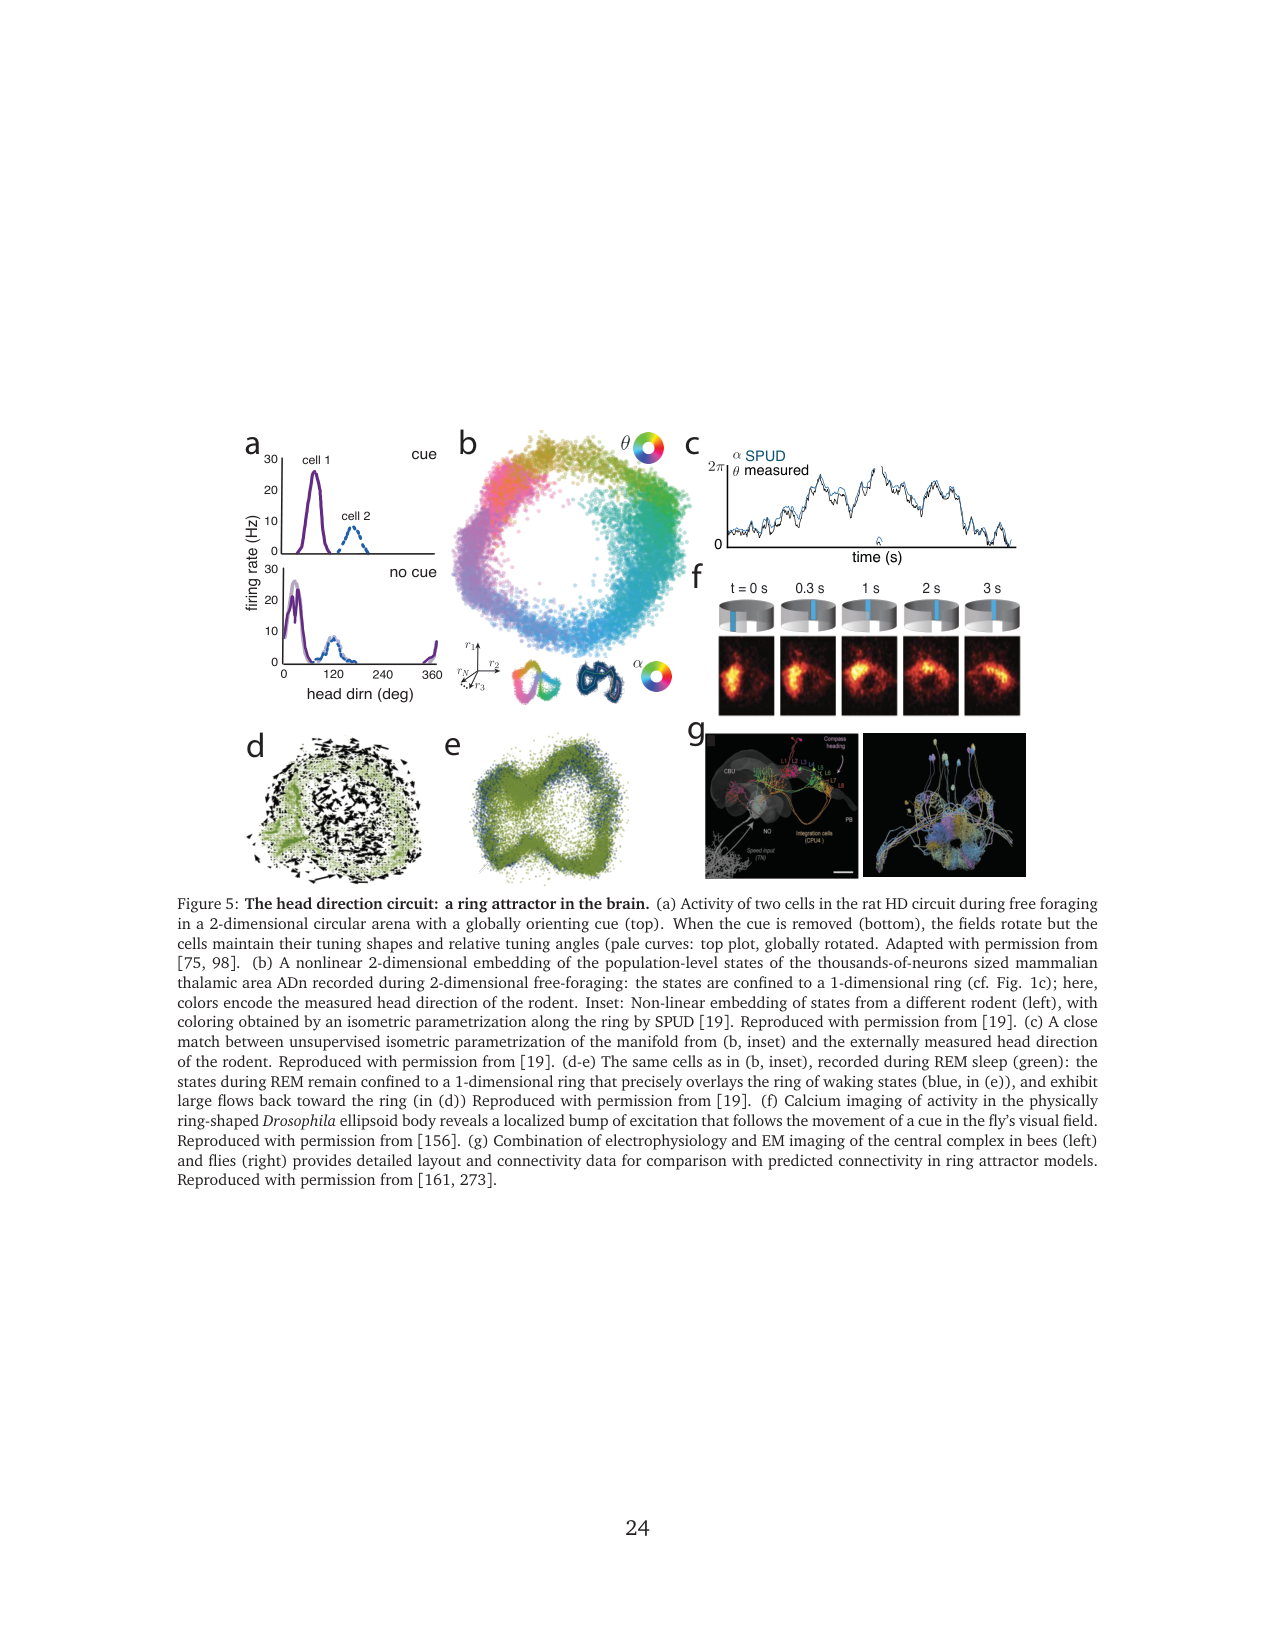
头方向回路(环吸引子)。 大鼠丘脑前背核(ADn)有数千个神经元,把它们的群体活动做非线性嵌入,得到的状态集是一条一维环,环上的位置与老鼠的实际朝向一一对应;用无监督等距参数化(SPUD)沿环展开,和实测头方向的匹配几乎完美(判据 4)。自然扰动(例如光遗传刺激)之后,状态流回环上(判据 2);清醒和 REM 睡眠记录到的是同一条环(判据 3)。果蝇的对应回路更直接:扇形体神经毡在解剖上就是物理的环形结构,一个活动斑块随转头移动;连接组已被完整追踪,实测架构与 copy-and-offset 双环模型定量吻合。这是连续吸引子理论最直接的实证之一。
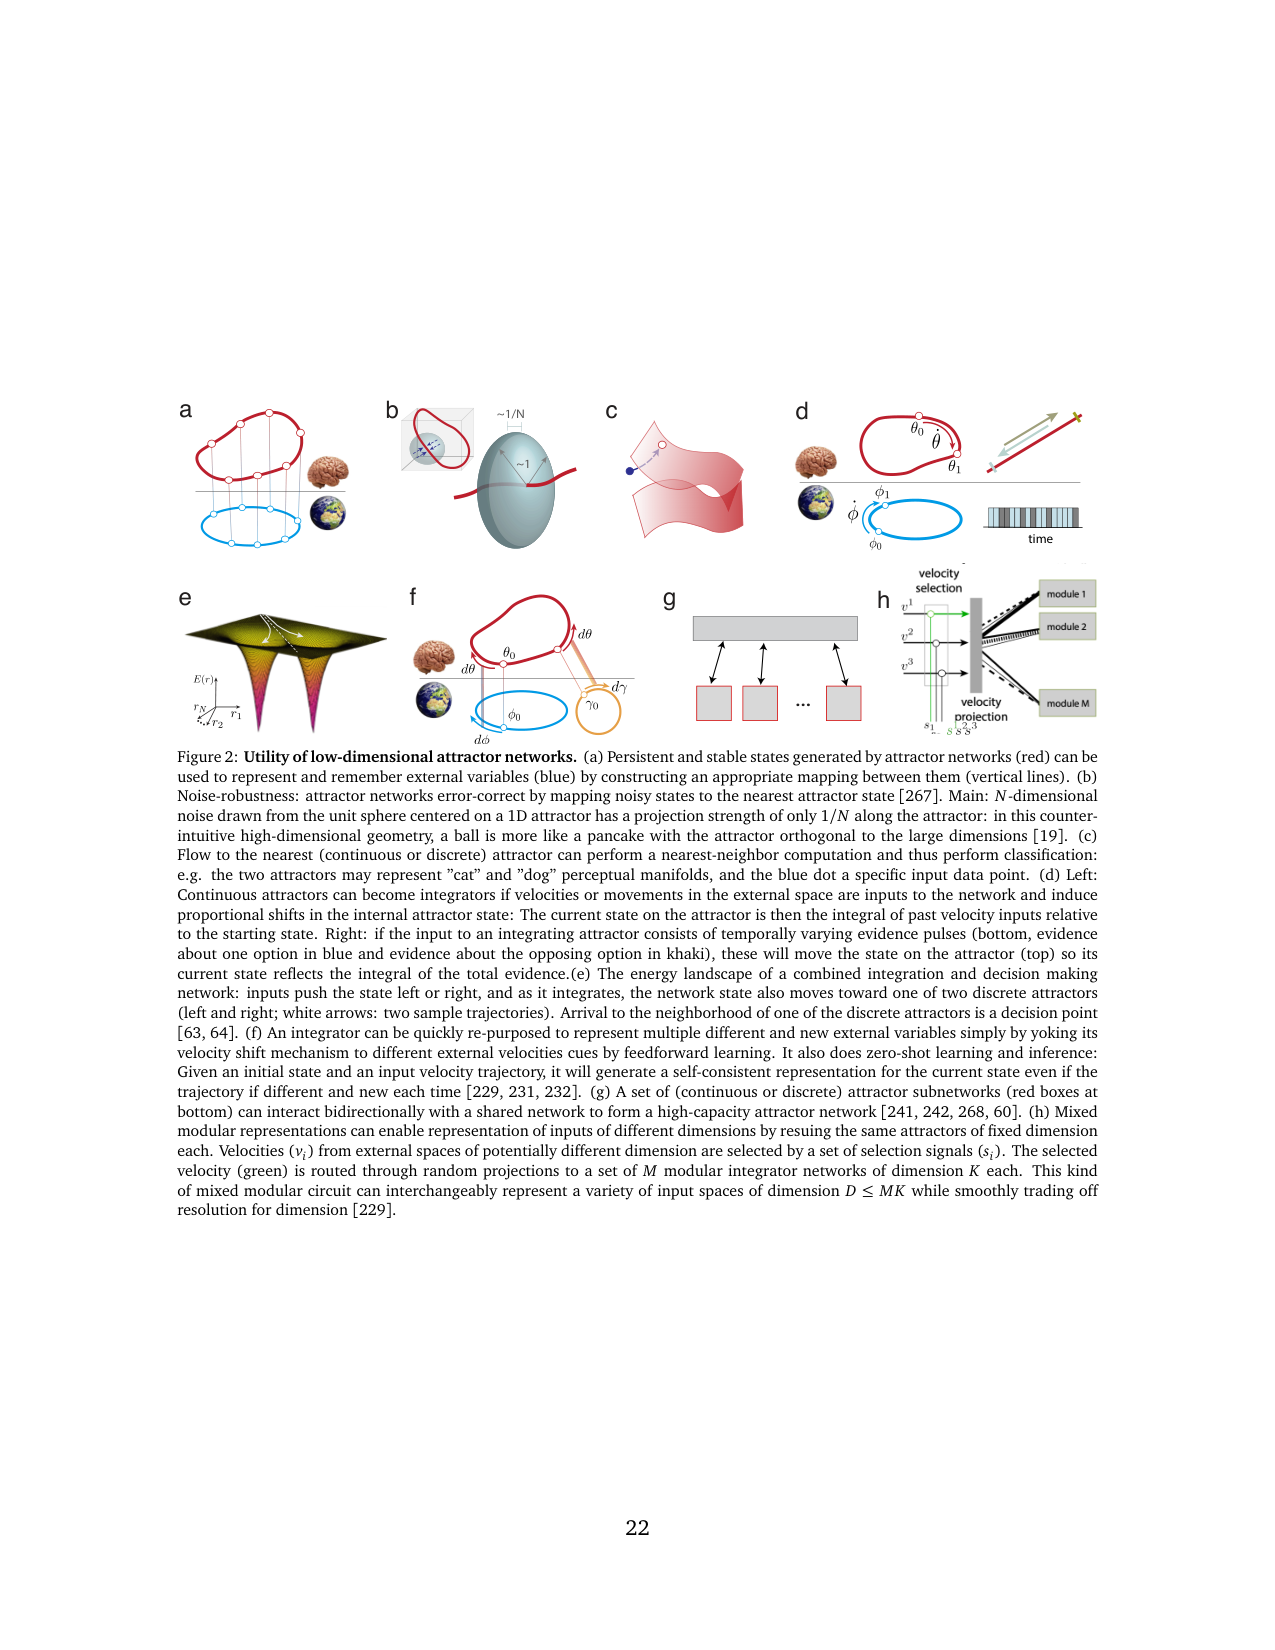
Figure 2 讲吸引子的计算效用,(d) 左图就是「积分 = flow map」的标准图示:速度输入引起状态沿流形位移,当前位置是速度的历史积分;(f) 说明一个积分器可以只靠「锚点 + 速度投影」就被复用来表示全新的变量。
网格细胞(环面吸引子)。 网格细胞用三角晶格状的发放模式铺满二维空间,一个模块(同一周期)的群体状态预测是二维环面。实测里,同模块细胞之间的相位关系跨环境、跨时间、跨环境缩放都保持;更关键的是,清醒探索时测到的细胞对相关结构,在整夜 REM 和非 REM 睡眠中都被保留——而位置细胞的相关结构在睡眠中丢失。这满足判据 3(状态是自主生成的),也排除了网格细胞只是读取上游位置细胞的解释。2022 年的大规模群体记录加拓扑数据分析直接可视化出环面流形,闭环验证了预测。
分级工作记忆(扩散漂移)。 猴子在延迟扫视任务里记住提示方向,前额叶/后顶叶皮层的延迟期活动是一个活动斑块,沿一维流形随机游走:斑块位置方差随时间线性增长,形状却基本不变——这正符合连续吸引子模型对「沿流形方向无法去噪」的预测(方差 ~ K·T/N);而且斑块位置能预测猴子后续的行为误差,说明它就是记忆的载体。
6. 反例与存疑回路
综述也主动给出没过审的候选。V1 朝向调谐:对幻觉边缘的响应比真实边缘晚得多,更像自上而下输入或前馈驱动,加上连续吸引子状态移动慢、需要强输入,与视觉系统要快速响应的要求不符。位置细胞:跨环境会「重映射」、睡眠中细胞对相关性不保留,而且单个同质网络里放多张高分辨率空间地图容量严重受限(2D 空间 10 cm 分辨率需要 N ~ P^D 个神经元,约 10^6 个海马细胞最多只能表示 100 m²)——位置细胞更可能由网格细胞加边界/地标等前馈线索的合取构成,但 CA3 递归在回放(replay)中的角色又表明递归与前馈在协作。运动皮层轨迹:记录到的低维轨迹可能来自行为本身的低维性,扰动实验还提示轨迹由丘脑输入驱动。这三个例子提醒:判据是用来排除的,低维不等于吸引子。
7. 容量、灵活性与展望
最后一部分回应「稳定性 vs 灵活性」的矛盾。全连接对称网络 N 个神经元只能指定约 N 个吸引子态;模块化方案把容量变成组合的:M 个模块、每个约 N 个态,独立组合就是 ~N^M 个态,耦合起来还能让这些态都有合理吸引域。更有意思的是「所有已确证的连续吸引子回路同时都是积分器」这条观察:建立表示通常要逐一访问每个外部状态(查表),而积分器只需要两条前馈对应——一个锚点(把某个外部值对准某个内部状态)+ 一条速度投影(把外部速度接进 shift 机制)——之后所有未访问过的值都能自动生成一致表示,支持零样本推断。把这条路推到极致就是 mixed modular codes:外部 D 维空间的运动随机投影到 M 个 K 维积分器模块(D ≤ M·K),每个模块全息参与所有维度,分辨率与维度可以即时互换而无需重配递归权重。对 ANN 研究者的启示是镜像的:训练网络解决记忆、积分、决策任务时,涌现出的正是吸引子动力学(Sussillo & Barak、Mante et al.、Vyas et al. 等),说明当计算单元是「无记忆神经元」时,吸引子结构可能是这类问题的一般解。
8. 局限
第一,线性积分器要求反馈精确抵消衰减,这个精细调参问题在生物里如何被实现和维持,论文承认没有答案。第二,连续吸引子依赖权重连续对称性,对称一破就碎,长期维持对称的机制未知。第三,发育/学习模型都不完整:无监督模型要求均匀探索输入空间并抑制递归权重,反向传播模型没有给出生物可实现的损失来源。第四,离散多稳态(双稳态之外)的回路证据明显弱于连续吸引子,感知双稳态甚至找不到局域回路。第五,综述本身不做新实验、不提供代码,结论依赖引用的群体记录实验的质量与可复现性。对想深入的人,建议从 Figure 1 和 Figure 2 的词汇表出发,再按判据逐条对照 Figure 5 的头方向证据。
这是一篇权威综述:把『大脑如何用记忆、做积分、做决策』统一到吸引子动力学这一个框架下,给出判定一个神经回路是否真的实现吸引子动力学的五条可检验判据,并用眼动积分器、头方向回路、网格细胞等已被群体记录和状态空间分析严格验证的实例,论证大脑确实构造并使用连续吸引子;同时提出利用积分器复用与模块化组合来同时获得鲁棒性、容量与灵活性的路线。对 ML 读者来说,它把『记忆=稳定不动点、积分=flow map』这两条词汇表落到生物硬件的具体实现上。
阅读提示
精读深度:泛读
清单提示:原文提示:连续吸引子/积分器的权威综述;快速建立「记忆=稳定不动点、积分=flow map」的词汇表。
问题
要解决什么:单个神经元只能在其膜电容对应的 10–100 毫秒时间尺度上积分输入,但工作记忆、证据累积、路径积分都需要 1–100 秒量级的持续活动与长时积分。吸引子理论主张:递归回路通过集体正反馈把某些活动状态稳定下来,稳定态就是记忆,速度输入沿流形移动状态就实现积分。这篇综述要回答的问题是:这套理论在大脑里到底有没有被证实?如何设计可检验的判据?哪些回路已经过关、哪些还存疑?
为什么 prior work 不够:Hopfield(1982)、Amari(1977)、Wilson & Cowan(1973)等早在四十多年前就提出了吸引子模型,但过去实验只能一次记录一两个神经元,无法直接检验模型的核心预测——状态空间中的低维结构。传统『调谐曲线』分析只看单个细胞活动与外部变量的关系,即使存在吸引子也测不出来。直到群体记录技术(数千个神经元同时记录)与状态空间分析(PCA、Isomap、t-SNE、拓扑数据分析)成熟,模型的『状态局域化、扰动流回、跨条件不变』等预测才第一次可以被直接检验;综述正是把这些预测、判据与证据系统地组织起来。
输入 / 输出
输入
| 名称 | 类型 | 说明 |
|---|---|---|
| 神经回路群体活动记录(综述的证据对象) | 群体发放活动(数千神经元,N = 10^2–10^7 量级) | 来自斑马鱼/金鱼与灵长类的眼动积分器、大鼠丘脑前背核(ADn)头方向回路、果蝇扇形体、内嗅皮层网格细胞、猴前额叶/后顶叶皮层的分级工作记忆、小鼠前外侧运动皮层(ALM)等 |
| 扰动与输入条件(检验用操作) | 电刺激/光遗传扰动、光照与黑暗、清醒与 REM 睡眠、有无外部线索 | 用于检验五条判据:状态局域化、扰动后流回、跨条件不变性、等距性、解剖结构对应 |
输出
| 名称 | 类型 | 说明 |
|---|---|---|
| 五条可检验判据(面向实验者的输出) | 定性/定量标准 | 1) 状态局域在低维集合;2) 扰动快速流回低维状态;3) 吸引子状态集跨时间/条件/输入移除/睡眠保持不变(最关键的判据);4) 积分器回路具有等距性(流形上的长度与外部变量位移成正比);5) 解剖结构存在低维连接与对称性 |
| 分类结论:哪些回路已确证/存疑 | 证据分级 | 已确证:眼动积分器(线吸引子)、头方向回路(环吸引子)、网格细胞(环面吸引子)、分级工作记忆;存疑或反例:V1 朝向调谐、位置细胞、运动皮层轨迹 |
控制频率:n/a(综述;引用的实验分布在毫秒级脉冲输入与 1–100 秒持续活动的时间尺度上)
数据集
| 数据 | 规模 | 备注 |
|---|---|---|
| n/a(综述论文,无自有实验数据集) | 证据来自被引用论文的群体记录 | 关键证据:ADn 数千神经元状态构成一维环、清醒与睡眠同环(Chaudhuri et al. 2019,Nat Neurosci);网格细胞环面流形直接可视化(Gardner et al. 2022);猴 PFC 延迟期一维扩散漂移(Wimmer et al. 2014);金鱼/猴眼动积分器系列实验(Seung 1996、Aksay et al. 2007、Miri et al. 2011) |
架构(摘要)
主干与结构
backbone:
参数:
类型:n/a 综述
关键组件
- 递归权重矩阵 W(对称→能量面可写;连续平移/旋转不变→连续吸引子)
- 局域兴奋 + 更广抑制(Turing 模式形成三要素之一,产生活动斑块)
- 非线性饱和神经元或抑制主导的递归(保证活动有界)
- copy-and-offset 双拷贝结构(积分器:两拷贝非对称权重、推挽平衡、速度输入打破平衡)
- 读出/锚定机制(把外部变量值映射到吸引子状态;积分器只需一个锚点 + 速度投影)
为什么这样设计
本文是综述,没有提出新网络结构;它分析的是吸引子网络这一模型族的状态空间结构。读者应把『架构』理解为:N 个神经元的递归回路 + 权重矩阵 W 的对称性/非对称性决定状态空间中出现哪种吸引子——对称强权重给出点吸引子(Hopfield/WTA),带连续对称的局域竞争给出连续流形(线/环/环面),非对称权重给出极限环或混沌,线性神经元用反馈精确抵消衰减给出线吸引子。
→ 详见 Architecture tab。
关键结果
| 指标 | 值 | 最强 baseline | setup |
|---|---|---|---|
| 对照:40 年前 Hopfield/Amari 只有理论模型、单细胞记录无法检验;如今大规模群体记录 + 状态空间分析使直接验证成为可能 | 综述整合的群体记录证据:金鱼/灵长类眼动积分器(脉冲→台阶、黑暗中保持)、大鼠 ADn 数千神经元(状态嵌入为一维环)、内嗅皮层网格细胞(环面流形、清醒与 REM 睡眠保持) | ||
| 对照:同一回路在正常反馈下能在黑暗中保持稳定注视位置数秒,阻断反馈后时间常数显著缩短 | 眼动积分器实验:向单个眼动神经元注入瞬态电流只引起瞬态发放变化;用突触阻断剂降低网络反馈后积分变成泄漏型 | ||
| 对照:无吸引子的回路中噪声偏差随时间累积且无修正;离散吸引子将漂移降为 0,连续吸引子保留沿流形的漂移 | N = 10^2–10^7 个神经元的回路,K << N 的连续吸引子(如 K=1 的线吸引子);噪声按每神经元独立随机发放建模 | ||
| 对照:查表法复杂度随变量空间增长,积分器法只需 2 条前馈对应,且对新轨迹支持零样本推断 | 对比两种建立表示的方式:查表法需要访问每个外部状态并建立对应;积分器法只需锚定一个状态并把速度信号接到 shift 机制 | ||
| 对照:随机连接 Hopfield 网络虽然也有指数多个不动点,但吸引域小、不鲁棒;模块化构造给出鲁棒且有合理吸引域的指数容量 | 理论论证:全连接对称网络 N 个神经元只能指定 ~N 个态;2D 空间 10 cm 分辨率需要 N ~ P^D 个神经元,10^6 海马细胞最多 100 m² | ||
| 对照:已确证的网格/头方向回路在相同判据下全部通过,反例回路的证据则指向前馈或分布式机制 | 综述主动列举的反例:V1 简单细胞、海马位置细胞、灵长类运动皮层记录 |
Insights
- 判据 3(不变性)是吸引子判定的核心:状态是内部生成并由递归连接稳定,才可能在去除调谐输入、跨行为状态、甚至清醒与睡眠之间保持同一低维流形;这是把『看起来低维』与『真吸引子』分开的关键(第 4 节)。
- 『所有已确立的连续吸引子回路都是积分器』这条观察把记忆与积分重新绑定:积分不只是导航/证据累积的工具,它还是快速建立新表示的机制(锚点+速度→零样本),直接回应『稳定性 vs 灵活性』的矛盾(第 7 节)。
- 去噪与漂移是一枚硬币的两面:连续吸引子擦掉流形正交方向的噪声(~K/N 投影),代价是沿流形方向的中性漂移(方差 ~K·T/N);记忆精度与流形维度、神经元数量之间存在可计算的权衡(第 3 节)。
- 吸引子的『物理实现』在果蝇头方向回路里得到最直接的印证:神经毡本身就是物理环形,连接被全追踪,实测实现了 copy-and-offset 双环架构(第 6.2 节)。
vs 同类工作
- vs Hopfield 1982 / Amari 1977:他们给出离散与连续吸引子的数学模型,但没有(也不可能)验证大脑是否使用;本篇把理论预测转成五条可检验判据,并整合群体记录证据给出『已确证』结论
- vs Chaudhuri & Fiete 2016(Nat Neurosci《Computational principles of memory》):同样讨论连续吸引子与记忆,本篇更系统地把『证据』作为主线(判据→实验→分级),并新增灵活性路线(积分器复用、模块化、mixed modular codes)
- vs 聚焦单一系统的综述(如 grid cell 或 working memory 综述):本篇横跨离散/连续/非平稳三类吸引子与多个物种多个脑区,给出统一的机制词汇表(对称性、模式形成、copy-and-offset),并主动给出未通过判据的反例回路
- 对 ML/生成模型读者的价值:本篇提供『flow map』的生物参考实现——递归回路如何把速度输入积分成状态位移(copy-and-offset 推挽机制),以及为何低维中性流形自带去噪(K/N 投影);反向地,ANN 在训练记忆/积分/决策任务后涌现吸引子动力学(Sussillo & Barak、Mante et al.、Vyas et al.),与本文框架互相印证
局限
- 线性/近线性积分器要求反馈精确抵消衰减,权重必须精细调参;大脑如何通过发育或学习达到并维持这种精细调谐,论文承认仍未解决
- 连续吸引子依赖权重中的连续对称性,对称一旦被破坏(噪声、发育误差)就碎成离散态,因此这种结构的鲁棒性存疑;如何长期维持对称性未知
- 发育/学习模型都不完整:无监督联想塑性模型要求对输入变量空间做均匀探索并抑制递归权重;基于误差反向传播的模型没有给出生物可实现的损失函数与学习规则来源
- 离散多稳态(除双稳态外)的回路级证据明显弱于连续吸引子:感知双稳态找不到局域回路,多稳态候选区(海马、嗅球等)大多只有结构提示,尚未定量通过判据 1–3
- 几个曾被假设为吸引子的系统检验后指向前馈机制或证据不足:V1 朝向调谐、位置细胞(跨环境重映射、睡眠相关性丢失)、运动皮层轨迹(行为本身低维 + 丘脑驱动)
- 综述本身不做新实验、不提供代码与数据,结论强度完全依赖被引用实验(多数来自少数几个实验室的群体记录)的质量与可复现性;低发放率同步发放网络是否支持吸引子动力学仍开放
可复现性
- code:n/a(综述论文,无代码)
- weights:n/a
- data:证据来自引用的实验数据集(ADn、网格细胞、眼动积分器、猴 PFC 等群体记录),原始数据分别属于各实验室
- note:判据与状态空间分析流程(嵌入、等距参数化、TDA)在原文中有方法学描述,可复现
主干与结构
backbone:
参数:
类型:n/a 综述
关键组件
- 递归权重矩阵 W(对称→能量面可写;连续平移/旋转不变→连续吸引子)
- 局域兴奋 + 更广抑制(Turing 模式形成三要素之一,产生活动斑块)
- 非线性饱和神经元或抑制主导的递归(保证活动有界)
- copy-and-offset 双拷贝结构(积分器:两拷贝非对称权重、推挽平衡、速度输入打破平衡)
- 读出/锚定机制(把外部变量值映射到吸引子状态;积分器只需一个锚点 + 速度投影)
为什么这样设计
本文是综述,没有提出新网络结构;它分析的是吸引子网络这一模型族的状态空间结构。读者应把『架构』理解为:N 个神经元的递归回路 + 权重矩阵 W 的对称性/非对称性决定状态空间中出现哪种吸引子——对称强权重给出点吸引子(Hopfield/WTA),带连续对称的局域竞争给出连续流形(线/环/环面),非对称权重给出极限环或混沌,线性神经元用反馈精确抵消衰减给出线吸引子。
吸引子的形成机制:从离散点吸引子到连续流形与极限环
原文 caption:Mechanisms of attractor formation. Left column: layout of neurons and connections; middle column: stable population activity patterns; right column: state-space views. (a) Hopfield network stores input patterns as stable attractor states. (b) Winner-take-all dynamics with disjoint groups. (c) Neurons on a ring with local excitation and global inhibition → localized bumps, near-continuum of states forming a ring. (d) Neurons on a 2D sheet → periodic bump pattern, states form a torus. (e) Linear response neurons with precisely tuned feedback → line attractor. (f) Asymmetric ring connections → bumps flow, limit cycle. (g) Copy-and-offset mechanism for constructing integrators, for ring (left) and grid (right) circuits.
整篇综述的词汇表图,三列分别是连接结构、群体活动模式、状态空间。最有用的是把四类吸引子一次画清:(a) 离散点吸引子(记忆=稳定不动点);(c)(d) 连续吸引子(环、环面——记忆一个连续变量);(e) 线吸引子(积分器的基础);(f) 极限环(序列生成);(g) 直接画出『积分=flow map』的物理实现:双拷贝、非对称权重、速度输入让活动斑块沿流形移动。读图时抓住右列状态空间:点、线、环、环面、闭环轨迹。
吸引子的计算效用:表示、去噪、积分与快速表示学习
原文 caption:Utility of low-dimensional attractor networks. (a) Attractor states (red) represent external variables (blue) via a mapping. (b) Noise-robustness: N-dimensional noise on a 1D attractor has projection ~1/N. (c) Flow to nearest attractor performs classification. (d) Left: continuous attractors become integrators when velocities shift the internal state; current state = integral of past velocity. Right: evidence pulses integrate into a decision variable. (e) Energy landscape of integration + decision: state flows to one of two discrete attractors. (f) An integrator can be re-purposed to represent new variables by yoking the shift mechanism to new velocity cues; zero-shot inference. (g) Modular attractor subnetworks coupled via a shared network → high capacity. (h) Mixed modular codes: velocities from external spaces routed via random projections to M modular integrators of dimension K each.
回答『吸引子网络能拿来干什么』的图,也是『积分=flow map』最直接的一张图:面板 (d) 左,速度输入引起状态沿流形的位移,当前位置等于速度对时间的积分,这正是生成模型里『学习向量场、积分 ODE 得到输运轨迹』的神经版本;面板 (f) 说明积分器可以被快速复用来表示新的连续变量(一个锚点 + 速度投影即可,零样本);面板 (b) 给出去噪的几何论证:噪声球在低维流形上的投影只有 ~K/N;(h) 展示混合模块编码如何用一个固定维度的积分器集合表示任意维度输入。
头方向回路:脑中环吸引子的直接证据
原文 caption:The head direction circuit: a ring attractor in the brain. (a) Activity of two cells in the rat HD circuit during free foraging; when the global cue is removed, fields rotate but tuning shapes and relative angles are preserved. (b) Nonlinear embedding of population states of thousands of ADn neurons: states confined to a 1D ring; colors encode measured head direction; inset: isometric parametrization (SPUD). (c) Match between unsupervised isometric parametrization and measured head direction. (d-e) Same cells during REM sleep: states remain on the ring overlapping the waking ring, with large flows back toward the ring. (f) Drosophila ellipsoid body: physical ring of neuropil with a localized bump tracking a visual cue. (g) EM-based connectivity traces for quantitative comparison with ring attractor models.
这是『大脑确实用连续吸引子』的最强直接证据之一:(b) 把数千个 ADn 神经元的活动状态压到低维,得到一条一维环,环上的位置与老鼠实际朝向一一对应;(c) 等距参数化(判据 4)与实测头方向吻合;(d)(e) 清醒与 REM 睡眠时环完全重叠、扰动会流回环上,满足判据 2 和 3;(f)(g) 果蝇扇形体在解剖上就是物理的环形结构,且连接已被全追踪,能定量对照环吸引子模型。
🎧 音频版
时长 20:19 · Edge TTS
Attractor and integrator networks in the brain(泛读 · 对话版)
一上来先问一句:大脑凭什么叫「记住」?
小播:今天这篇是神经科学的,跟咱们生成模型的系列有什么关系?
老播:关系很直接。这是 Khona 和 Fiete 发在 Nature Reviews Neuroscience 上的权威综述,一句话概括:它把大脑维持记忆、做积分、做决策这三件事,统一到一个动力学框架里,还给出了可以检验的判据和已经验证过的脑区。对做生成模型的听众来说,它真正值钱的是两张词汇表:记忆等于稳定不动点,积分等于 flow map。
小播:flow map?那不是 flow matching 那套东西吗?
老播:就是同一个概念,这也是我们做这期的原因。生成模型里我们学一个速度场,从噪声出发积分 ODE,得到一条输运轨迹;这篇综述告诉我们,大脑的神经元回路干的是同一件事——递归反馈实现速度场,活动斑块沿流形移动实现积分。今天要讲清楚两件事:点吸引子怎么当记忆用,连续吸引子怎么当积分器用,以及为什么现在科学家敢说大脑真的在用这套机制。
先把两个词焊死:记忆是稳定不动点,积分是 flow map
小播:从最基础的来,什么叫吸引子?
老播:吸引子是动力系统里的概念。状态空间里存在一个最小的集合,附近所有状态最终都会流进去,这个集合就叫吸引子。最熟悉的一类是稳定不动点——单个点,周围的状态全被它吸过去。注意「流进去」这个词,你在生成模型里已经见过无数次了,神经科学用了六十年。
小播:那「记忆」和「不动点」怎么对应?
老播:Hopfield 在 1982 年做了这件事:把一群模式用 Hebbian 学习(一起激活的神经元互相加强彼此连接的规则)写进网络的对称权重里,每个模式就变成一个不动点。之后你给网络一个残缺的、带噪的版本,动力学自动把它拉回最近的那个不动点——这就是内容寻址记忆。所以「记忆等于稳定不动点」在这里是字面意思:记住一个东西,等于在状态空间里造出一个吸得住的状态。离散吸引子记住离散选项,比如二选一、猫和狗;判别任务里每个类别对应一个点。
小播:那连续变量呢?头朝向是 0 到 360 度,总不能建 360 个点吧?
老播:这就轮到连续吸引子了。如果网络的权重带连续对称性——平移不变、旋转不变——不动点就连成一条流形:线、环、环面。环上的每一圈位置都是中性稳定的状态,朝向 45 度对应环上的一点,90 度对应另一点,整个朝向空间被摊在环上。网格细胞更夸张,二维空间对应一个环面,走一步对应环面上沿某个方向滑一段。做生成模型的听众可以把连续吸引子想成「一批中性稳定的不动点排成一条曲线」,和流形上处处可停的输运终点是同一个几何。
小播:这里有个前提我还没完全接住——「状态空间」到底长什么样?你说状态是一个点,这个点的坐标是什么?
老播:坐标就是每个神经元的发放率。一个回路有 N 个神经元,某时刻的群体活动就是一个 N 维向量,状态空间就是这 N 维空间,吸引子是这里面的一小片区域。为什么过去几十年验证不了吸引子?因为实验一次只能记一两个神经元,等于只看到 N 维空间里两个坐标轴的投影,而吸引子的结构藏在 N 维里,单细胞调谐曲线根本看不见。群体记录一次抓几千个神经元,再用降维把它压回低维看,才第一次看见那条环。这个「先记群体、再压维度」的方法论,是整篇综述立得住的前提。
小播:好,那「积分等于 flow map」又怎么讲?
老播:这是第二个关键词,也是和生成模型接得最紧的地方。连续吸引子本身只会维持状态不动;要变成积分器,得加一个移动状态的机制。原理一句话:给网络输入速度信号,速度引起活动斑块沿流形位移,那么当前位置就等于速度对时间的积分。翻译成生成模型的语言就是:学一个向量场,从初始点出发积分 ODE,终点就是输运结果。脑回路和 flow matching 是同构的,区别只在实现——那边是神经网络参数化的向量场和数值积分器,这边是递归权重实现的向量场和神经元活动斑块的物理位移。所以我说积分等于 flow map,这个对应落在同一个数学对象上,两边的区别只在硬件实现。
连续吸引子怎么造:正反馈、模式形成,还有那个神秘的 copy-and-offset
小播:词汇表有了,那这种网络怎么造出来?有施工图纸吗?
老播:有。先记一条通用原则:强递归正反馈。正反馈对抗活动衰减,把某些状态稳定下来。哪些状态被稳定,由权重决定。对称权重还有额外福利——存在 Lyapunov 能量面,稳定态是能量极小值,状态像球滚下山坡一样流进吸引子,分析起来很干净。这是从 Hopfield 时代就有的工具箱。
小播:这是离散吸引子的造法,连续的呢?
老播:综述给了三个充分条件。第一,神经元有饱和非线性,或者递归是抑制主导配均匀兴奋驱动,保证活动有界,不会越涨越高。第二,递归权重足够强,而且是「局域兴奋加更广抑制」的竞争格局,触发图灵模式形成,产生局域的活动斑块——这一条和图像生成里「局部相互作用产生全局模式」是同一个数学家族。第三,权重有连续对称性,斑块可以出现在任意位置,形成连续一族等价状态。三条齐了就有连续吸引子。反过来,对称性一被破坏,连续吸引子就碎成一堆离散态,所以这个结构天生有点脆弱。
小播:那积分器呢?光有流形还不会动啊。
老播:这是综述里最有工程味道的部分,叫 copy-and-offset,复制加偏移。你造两个回路拷贝,每个拷贝的权重稍微非对称——活动斑块把兴奋中心偏置到自己旁边,于是斑块倾向于朝某个方向流动。两个方向相反的拷贝耦合起来,互相推拉,形成推挽平衡,斑块就稳定住。这时候给一个速度输入,它差分地作用到两个拷贝上,打破平衡,当前更活跃的那个群体带着斑块沿它的流动方向走。位移等于速度积分,就这么实现。而且这个原理统一了所有已知的积分器模型——眼动的、头方向的、网格细胞的,全是一个套路。我在这里再重复一次核心句:积分等于 flow map,在神经硬件上就是 copy-and-offset 双拷贝推挽。
小播:等一下,为什么非要用两个拷贝?一个不行吗?
老播:一个非对称拷贝只能让斑块朝一个方向流,那叫极限环,回不了头。两个方向相反的拷贝耦合,才有一个可以双向移动、随时停在中性位置的状态——这正是积分器需要的:每个位置都能停,速度来了才走。这个「处处可停、随速度移动」的性质,和 flow matching 里直线路径上每个时刻都可以停、可以继续积分,是同一个设计意图。
小播:那去噪呢?吸引子网络经常被夸鲁棒,鲁棒在哪?
老播:好在几何上,这是综述里我最想让你记住的一个论证。设回路有 N 个神经元,吸引子流形只有 K 维,K 远小于 N。噪声是每个神经元独立随机发放产生的,等价于在 N 维状态空间里一个各向同性的噪声球。这个球在 K 维流形方向上的投影只有约 K/N——拿 N 等于一万、K 等于一来说,就是万分之一量级。所以正交于流形的噪声全部被擦掉,流形上的位置基本不动,记忆就不会被噪声糊掉。代价是:沿着流形方向的噪声没法擦,会造成累积漂移。这个式子出现之前先给预期:它要回答「沿流形方向的噪声会积累成多大的误差」。答案的写法是,漂移的方差正比于 K 乘 T 除以 N,逐符号拆开——K 是吸引子流形的维度,可漂移的方向数;T 是记忆保持的时间;N 是神经元的数量。K 越小可漂移方向越少,T 越长漂移越积越多,N 越大单神经元噪声被平均得越干净。所以连续吸引子记忆的精度是一笔可以算的账:想稳定记住更长的时间,就要更大的网络或者更低维的流形。这个「擦掉大部分、留下一点漂移」的权衡,后面猴子的工作记忆实验会直接看到。
小播:那这种结构能装多少东西?N 个神经元是不是想存多少存多少?
老播:结果很反常识:全连接对称网络里 N 个神经元大约只能指定 N 个吸引子态。想表示高维变量更惨——二维空间做到 10 厘米分辨率,需要的神经元数随维度指数增长,N 大约等于分辨率 P 的 D 次方;拿小鼠海马约 10^6 个细胞来算,顶多表示 100 平方米。所以综述推了一条新路线:模块化。M 个模块、每个约 N 个态,独立组合就是 N 的 M 次方个状态,指数级扩容;再靠 shift 机制把模块耦合起来,这些状态还有合理的吸引域,不会一碰就崩。更妙的是复用:综述观察到一个事实,所有已确证的连续吸引子回路同时都是积分器。积分器建立新表示只需要两条前馈对应——一个锚点,把某个外部值对准某个内部状态;一条速度投影,把外部速度接进 shift 机制。之后所有没访问过的值都能自动生成一致表示,相当于零样本。做生成模型的人值得记住这个设计:大脑表示新的变量 X、再表示 Z,靠的是换速度投影,不用重训整个网络。
证据时间:眼动积分器、头方向环、还有睡觉都不散的网格细胞
小播:理论再漂亮也得验货,这篇综述凭什么说大脑「真的」在用吸引子?
老播:因为它先立规矩再验货,给了五条判据。第一,群体状态要局域在一个低维集合上。第二,扰动之后状态要快速流回这个集合。第三,这个状态集要跨时间、跨条件、去掉调谐输入、甚至清醒睡眠都不变——这条最关键,因为前两条低维输入或者前馈投影也能假装出来,只有递归连接内部稳定化的结构才能做到。第四,积分器还要满足等距性:流形上走一段,对应外部变量走一段,比例恒定。第五,解剖结构上能找到对应的低维连接和对称性。方法上,一到二维的流形可以直接用 PCA 看,环和环面这种带洞的拓扑结构,要上非线性嵌入和专门的拓扑数据分析(TDA)才能识别出来。
小播:拿判据去验,先看哪个?
老播:先说眼动积分器,最经典的线吸引子。它把约 100 毫秒的扫视脉冲命令,积成稳定的台阶信号,让眼睛停在新角度,关灯了没有视觉反馈也能保持好几秒——单个神经元的膜电容只够积分 10 到 100 毫秒,这个回路把时间尺度拉长了三个数量级。对照组做得非常干净:往单个神经元注入电流,只有瞬态反应,证明积分发生在网络层面;用药物降低网络反馈,积分器就变成漏水的;再用虚拟视觉环境制造人工视网膜滑移,训练能把失稳的积分器调回稳定。从机制到可塑性,闭环了。
小播:头方向回路呢?这是不是最出名的一个?
老播:是,证据也最完整。大鼠丘脑前背核有几千个神经元,把群体活动做非线性嵌入,得到的状态集就是一条一维环,环上的位置和老鼠实际朝向一一对应。用无监督方法沿环做等距展开,和实测头方向的吻合几乎完美,这是判据四。读这张嵌入图有个技巧:图里点的颜色标的是老鼠实测朝向,如果环上的颜色是连续渐变而不是乱序分布,说明内部状态和外部位姿一一对应。用光刺激(光遗传)扰动之后,状态流回环上,这是判据二。清醒和快速眼动睡眠(REM)记录到的是同一条环,这是判据三。果蝇那边更直接:扇形体神经毡解剖上就是物理的环形结构,连接组被完整追踪,实测就是 copy-and-offset 双环架构。这几条合起来,是目前连续吸引子最硬的实证。
小播:网格细胞有什么不一样?
老播:网格细胞是二维的,预测的流形是环面。它的亮点在判据三的睡眠实验:清醒时测到的细胞对相关结构,整夜 REM 和非 REM 睡眠都保留;对照的位置细胞,相关性在睡眠里丢了。这一条同时干了两件事——证明网格细胞的状态是自主生成的,顺便排除了「网格细胞只是读取上游位置细胞」的说法。2022 年的大规模群体记录加拓扑数据分析直接可视化出环面,闭环了。分级工作记忆那边,直接说结果:猴前额叶和顶叶在延迟期维持一个活动斑块,沿一维流形随机游走,位置方差随时间线性增长、斑块形状不变,这正是模型预测的「沿流形方向无法去噪」的漂移定律;而且斑块位置能预测猴子接下来会不会做错,说明它就是记忆的载体。离散那边的例子是 ALM:小鼠前外侧运动皮层在二选一延迟任务里,约一秒的延迟期活动收敛到两个终点之一,扰动要么被擦掉、要么直接翻转到另一个终点导致做错——双稳态吸引子。
小播:所以连续和离散两边都有实证?
老播:对,但强度不一样。综述的结论是:连续吸引子这边证据最完整,离散多稳态那边,双稳态有实锤,更多态的证据还弱。它还主动列了三个没过审的候选:V1 朝向调谐更像前馈驱动,位置细胞跨环境重映射、睡眠不保持,运动皮层轨迹的低维性可能来自行为本身低维。这三个反例恰恰说明判据有用——低维不等于吸引子。
它站在哪条线上:从 1982 年的 Hopfield 到今天
小播:最后把这篇放进谱系,它前面有什么、旁边有什么?
老播:源头是 Hopfield 1982、Amari 1977 那批模型,四十年前就把离散和连续吸引子的数学建好了,但当时一次只能记录一两个神经元,模型的核心预测根本没法测。中间隔了一代人,靠群体记录技术和状态空间分析成熟——PCA、Isomap、t-SNE、拓扑数据分析——才把「状态低维、扰动流回、跨条件不变」变成可以测量的量。这篇综述的定位就是站在这个交叉点上,把散在各处的系统神经科学证据整理成一套判据加分级清单,再补上「灵活性」这条新路线。旁边平行的一条线是 ANN:Sussillo、Mante、Vyas 那批工作发现,训练网络做记忆、积分、决策任务,涌现出来的正是吸引子动力学——无记忆的神经元单元要完成长程积分任务,吸引子结构几乎是被逼出来的解。这和生成模型这边 flow matching 的经验互相印证:要让简单单元完成长距离输运,就得给它一个能积分的结构,不管这个结构是数值 ODE 还是递归回路。
别把综述当圣经:至少有三个没解决的问题
小播:那这篇综述有什么软肋?我们读出来几条?
老播:至少三条,它自己也承认。第一是精细调参问题:线性积分器要求反馈精确抵消衰减,差一点都不行,大脑怎么通过发育或者学习达到并维持这种精度,没有答案。第二是连续对称性很脆弱:权重对称被破坏,连续吸引子就碎掉,长期维持对称的机制未知。第三是发育和学习模型都不完整:无监督模型要求均匀探索输入空间、还得抑制递归权重;反向传播模型没有给出生物可实现的损失来源。从我们自己读的角度再加两条:离散多稳态除了双稳态,回路级证据明显弱于连续吸引子,感知双稳态连局域回路都找不到;综述本身不做实验、没有代码,结论强度取决于被引用的那批群体记录实验的质量和可复现性。
小播:这些局限会影响它前面说的结论吗?
老播:不影响「大脑存在连续吸引子」这个主结论——眼动、头方向、网格细胞三条线互相独立,证据链足够硬。但影响我们对范围的想象:它证明的是「大脑用了一些这样的结构」,没证明「大脑普遍用这套结构」。V1、位置细胞这些反例提醒我们,前馈驱动在很多系统里可能才是主角,吸引子只出现在那些确实需要长时记忆和积分的地方。这个边界感,比「大脑全是吸引子」的口号有用得多。
收尾:本期记住这三件事
小播:好,最后把三件事焊死。第一件是什么?
老播:第一,记忆等于稳定不动点。Hopfield 把模式写进权重,每个模式是一个点吸引子,残缺输入会被拉回最近的不动点,这是内容寻址记忆;连续变量靠连续吸引子——环上一点对应一个角度,环面一点对应一个位置,权重对称性给出这整条中性稳定的流形。第二,积分等于 flow map。速度输入让活动斑块沿流形位移,当前位置是速度的时间积分;生成模型里学速度场、积分 ODE 是同一个数学对象,大脑用递归权重和 copy-and-offset 双拷贝推挽实现了它。第三,证据是真的。五条判据里最关键的是跨条件不变性,眼动积分器、头方向回路、网格细胞都过了关——REM 睡眠里环不散、环面不散,这是系统神经科学目前最完整的成功故事之一。
小播:老播再补一句,这篇对后续工作的意义?
老播:它把「吸引子」从模型猜想变成可检验、可分级的研究纲领,也留给生成模型研究者一个镜像问题:既然无记忆单元做长程输运就需要可积分的结构,我们的 flow 模型能不能从大脑的模块化复用——N 个模块组合出 N 的 M 次方个状态、一个积分器靠锚点加速度投影零样本表示新变量——里借一点容量和灵活性的设计。这句收尾,我们不用总结性套话,就记住三件事:记忆是不动点,积分是 flow map,证据在头方向那条环上。